
Perorálny faktor indukovateľný hypoxiou prolylhydroxylázový inhibítor Enarodustat pôsobí proti zmenám v metabolizme energie obličiek v počiatočných štádiách diabetickej obličkovej choroby
Mar 02, 2022
Kontakt: emily.li@wecistanche.com
Úvod
Divízia nefrológie a endokrinológie, Vysoká škola medicíny Tokijskej univerzity, Tokio, Japonsko; Výskumné štipendium pre mladých vedcov, Japonská spoločnosť na podporu vedy, Tokio, Japonsko; Biologické a farmakologické výskumné laboratóriá,
Central Pharmaceutical Research Institute, Japan Tobacco Inc., Takatsuki, Japonsko; Katedra systémovej farmakológie, Vysoká škola medicíny Tokijskej univerzity, Tokio, Japonsko; Laboratórium pre syntetickú biológiu, RIKEN Center for Biosystems Dynamics Research, Suita, Japonsko; a WPI International Research Center for Neurointelligence, Inštitúty pre pokročilé štúdium na Tokijskej univerzite (UTIAS), Tokijská univerzita, Tokio, Japonsko.
Inhibítory prolylhydroxylázy faktora indukovaného hypoxiou (HIF), tiež známe ako stabilizátory HIF, zvyšujú produkciu endogénneho erytropoetínu a slúžia ako nové terapeutické činidlá proti anémiichronickýobličkychoroba. HIF indukuje expresiu rôznych génov súvisiacich s energetickým metabolizmom ako adaptívnu odpoveď na hypoxiu. Zostáva však nejasné, ako metabolické preprogramovanie vnútorného tkaniva stabilizáciou HIF ovplyvňuje patofyziológiuobličky choroby. Predchádzajúce štúdie naznačujú, že systémové metabolické poruchy, ako je hyperglykémia a dyslipidémia, spôsobujú zmeny renálneho metabolizmu, čo vedie k renálnej dysfunkcii vrátane diabetického ochorenia obličiek. Tu analyzujeme účinky enarodustatu (JTZ{0}}), perorálneho stabilizátora HIF, na energetický metabolizmus obličiek v skorých štádiách diabetického ochorenia obličiek pomocou streptozotocínom indukovaných diabetických potkanov a aloxánom indukovaných diabetických myší. Analýza transkriptómu odhalila, že enarodustat pôsobí proti zmenám v diabetickom renálnom metabolizme. Analýza transkriptómu ukázala, že metabolizmus mastných kyselín a aminokyselín bol upregulovaný v diabetickom obličkovom tkanive a downregulovaný enarodustatom, zatiaľ čo metabolizmus glukózy bol upregulovaný. Tieto symetrické zmeny boli potvrdené metabolómovou analýzou. Zatiaľ čo glykolýza a metabolity cyklu trikarboxylových kyselín sa akumulovali a aminokyseliny redukovali v obličkovom tkanive diabetických zvierat, tieto metabolické poruchy boli zmiernené enarodustatom. Okrem toho enarodustat zvýšil pomer glutatiónu ku glutatióndisulfidu a zmiernil oxidačný stres v obličkovom tkanive diabetických zvierat. Stabilizácia HIF teda pôsobí proti zmenám v metabolizme energie obličiek, ku ktorým dochádza v incipientochdiabetikobličkychoroba.

Cistanche je veľmi dobrý pre funkciu obličiek
Prekladové vyhlásenie
Inhibítory prolylhydroxylázy faktora indukovaného hypoxiou (HIF) (tiež známe ako stabilizátory HIF) zvyšujú produkciu endogénneho erytropoetínu a slúžia ako nové terapeutické činidlá proti anémiichronickýobličkychoroba. Naše transkriptómové a metabolómové analýzy obličkového tkaniva u potkaních a myších diabetických modelov odhalili, že enarodustat (JTZ{0}}), perorálny stabilizátor HIF, pôsobí proti zmenám metabolizmu energie obličiek v skorých štádiách diabetickej choroby obličiek. Výsledky poskytujú dôležité údaje na extrapoláciu účinkov stabilizátorov HIF na energetický metabolizmus obličiek v klinických podmienkach, aj keď sú potrebné ďalšie štúdie na objasnenie toho, ako toto preprogramovanie metabolizmu obličiek pomocou stabilizátorov HIF ovplyvňuje progresiudiabetikobličkychoroba.
Predstavenie
Inhibítory prolylhydroxylázy faktora indukovaného hypoxiou (HIF) zvyšujú produkciu endogénneho erytropoetínu a slúžia ako nové terapeutické činidlá proti anémii pri chronických ochoreniach.obličkychoroba. Bunky sú vybavené obranným mechanizmom proti hypoxii a HIF je hlavným regulátorom tejto obrany. Obličky sú fyziologicky vystavené hypoxii a chronická hypoxia sa považuje za konečnú spoločnú cestu vedúcu ku konečnému štádiu ochorenia obličiek. Vzhľadom na to, že HIF indukuje expresiu rôznych génov súvisiacich s hypoxiou, stabilizátory HIF môžu mať pleiotropné účinky na progresiuobličkychorobyako aj zlepšenie anémie pri chronickýchobličkychoroba. Je zaujímavé, že HIF indukuje expresiu glykolytických génov a pyruvátdehydrogenázovej kinázy, ktorá inhibuje pyruvátdehydrogenázu v používaní pyruvátu ako paliva cyklu mitochondriálnej trikarboxylovej kyseliny (TCA).6,7 Toto metabolické preprogramovanie z cyklu TCA na glykolýzu potláča spotrebu kyslíka a je kritické na adaptáciu buniek vystavených hypoxickému prostrediu. Zostáva však nejasné, ako metabolické preprogramovanie obličkového tkaniva stabilizáciou HIF ovplyvňuje patofyziológiuobličky choroby. Diabetické ochorenie obličiek (DKD) je hlavnou príčinou konečného štádia ochorenia obličiek. Systémové metabolické poruchy, ako je hyperglykémia a dyslipidémia, spôsobujú zmeny metabolizmu obličiek, čo vedie k dysfunkcii obličiek vrátane DKD. Predchádzajúce štúdie ukázali zvýšený metabolický tok a akumuláciu metabolitov glukózy a cyklu TCA v diabetickom renálnom kortikálnom tkanive, čo môže súvisieť s mitochondriálnou dysfunkciou a progresiou DKD. Predpokladali sme, že stabilizátory HIF môžu zvrátiť zmeny metabolizmu v diabetickom renálnom kortikálnom tkanive, berúc do úvahy, že HIF ako adaptívna odpoveď na hypoxiu znižuje metabolický tok v bunkách, aby potlačil spotrebu kyslíka. Využitím transkriptómových a metabolómových analýz sme teda vykonali štúdiu proof-of-concept, aby sme komplexne pochopili, ako enarodustat (JTZ-951), perorálny stabilizátor HIF, ovplyvňuje zmeny metabolizmu obličiek vyskytujúce sa v skorých štádiách DKD.
VÝSLEDKY: Enarodustat indukuje metabolické preprogramovanie z cyklu TCA na glykolýzu v bunkách proximálneho tubulu obličiek
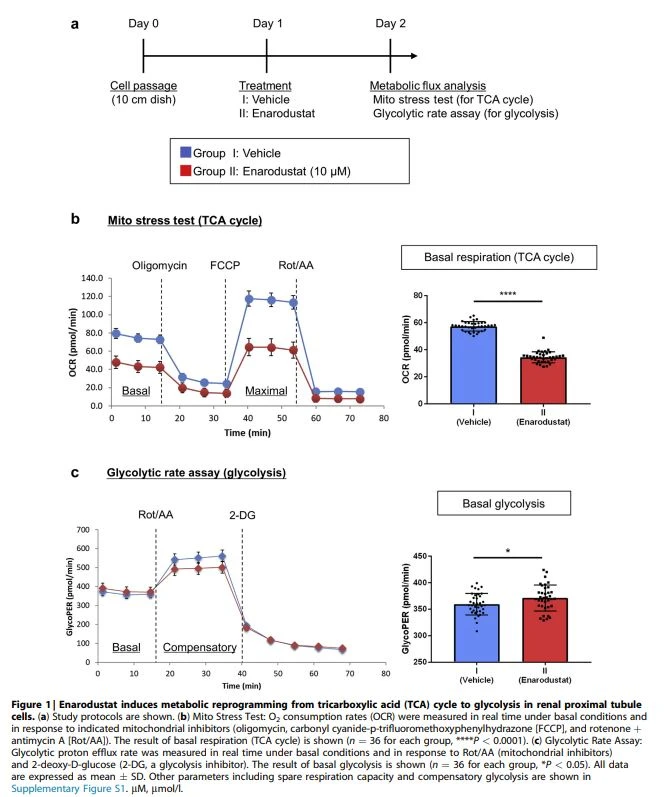
Keďže obličková kôra pozostáva hlavne z proximálnych tubulov, najprv sme skúmali účinky enarodustatu na metabolický tok buniek obličkových proximálnych tubulov in vitro. Najprv sa vykonal stresový test Mito (Agilent Technologies, Inc., Santa Clara, CA) a test glykolytickej rýchlosti (Agilent) v kultivovaných bunkách HK{0}}, línii epitelových buniek ľudského proximálneho tubulu (obrázok 1a). Enarodustat významne znížil mitochondriálne dýchanie (cyklus TCA) a zvýšil bazálnu glykolýzu, čo naznačuje metabolické preprogramovanie z cyklu TCA na glykolýzu (obrázok 1; doplnkový obrázok S1). Uskutočnili sme aj experiment s použitím malej interferujúcej RNA (siRNA) pre HIF -1 (obrázok 2; doplnkový obrázok S2). Zníženie HIF-1 pomocou siRNA zvrátilo metabolické zmeny (bazálne dýchanie, maximálne dýchanie, rezervná respiračná kapacita a produkcia adenozíntrifosfátu [ATP]) vyvolané enarodustatom, čo ukázalo, že metabolické preprogramovanie bolo hlavne prostredníctvom HIF-1 stabilizácia (obrázok 2; doplnkový obrázok S2). Aktivita pyruvátdehydrogenázy, dôležitý faktor pre bunky na použitie pyruvátu na poháňanie cyklu TCA, bola tiež znížená enarodustatom (obrázok 2f), ktorý bol kompatibilný s predtým publikovanými pozorovaniami.

Základné údaje o streptozotocínom indukovaných diabetických potkanoch
Z výsledkov experimentov in vitro sme predpokladali, že stabilizátory HIF môžu zmierniť zmeny metabolizmu v diabetickom renálnom kortikálnom tkanive prostredníctvom metabolického preprogramovania z cyklu TCA na glykolýzu. Najprv sme vybrali streptozotocínom (STZ) indukované diabetické krysy ako model pre experiment proof-of-concept na testovanie vyššie uvedenej hypotézy. V tomto modeli je diabetes rýchlo indukovaný, čo nám umožňuje pozorovať čisté účinky diabetu a stabilizátorov HIF na energetický metabolizmus v obličkovom tkanive v krátkom časovom období. Protokol štúdie a základné údaje z experimentov na STZ-indukovaných diabetických potkanoch sú znázornené na obrázku 3a. Potkany sme rozdelili do 3 skupín: skupina A (sham), skupina B (DKD) a skupina C (DKD þ enarodustat). Hladiny glukózy v krvnej plazme, glykozylovaného hemoglobínu HbA1c, triglyceridov a celkového cholesterolu v deň 14 boli významne zvýšené v diabetických skupinách v porovnaní so skupinou A, zatiaľ čo medzi skupinami B a C neboli žiadne významné rozdiely (obrázok 3d–g). Hoci sa hladiny kreatinínu v plazme medzi skupinami nelíšili, vylučovanie albumínu močom sa významne zvýšilo a glomerulomegália bola viditeľná v skupine B v porovnaní so skupinou A a enarodustat mal tendenciu tieto zmeny zvrátiť (obrázok 4). Hladiny dusíka močoviny v krvi boli vyššie v skupinách diabetikov, čo odrážalo dehydratáciu spôsobenú cukrovkou. Stručne povedané, obličky potkanov liečených STZ v našej štúdii predstavujú skoré štádiá DKD. Transkriptómové a metabolómové analýzy sa uskutočňovali s použitím renálneho kortikálneho tkaniva týchto potkanov.

Transkriptómová analýza renálneho kortikálneho tkaniva
Výsledky transkriptómovej analýzy renálneho kortikálneho tkaniva sú znázornené na obrázkoch 5 a 6. Analýza hlavných komponentov a analýza hierarchického zhlukovania ukázali, že skupiny A, B a C boli rozdelené do rôznych zhlukov (obrázok 5a a b). Rozdielne exprimované gény boli selektované pomocou │log2 násobnej zmeny (FC) │ Väčšie alebo rovné 0,5 a hodnota Q < 0,05.="" génová="" ontológia="" a="" analýzy="" kanonickej="" dráhy="" odhalili,="" že="" gény="" súvisiace="" s="" metabolizmom="" mastných="" kyselín="" boli="" upregulované="" v="" skupine="" b="" v="" porovnaní="" so="" skupinou="" a.="" na="" rozdiel="" od="" toho,="" gény="" súvisiace="" s="" metabolizmom="" glukózy="" a="" odpoveďou="" na="" hypoxiu="" vrátane="" siete="" hif-1="" boli="" upregulované="" v="" porovnaní="" so="" skupinou="" c="" so="" skupinou="" b="" (obrázok="" 5c="" a="" d).="" tiež="" sme="" vykonali="" analýzu="" obohatenia="" génovej="" sady="" (gsea)="" s="" použitím="" transkriptomických="" údajov="" (obrázok="" 6,="" tabuľky="" 1="" a="" 2).="" génové="" sady="" metabolizmu="" mastných="" kyselín="" a="" aminokyselín="" boli="" upregulované="" v="" skupine="" b="" v="" porovnaní="" so="" skupinou="" a="" (obrázok="" 6).="" naopak,="" tieto="" génové="" sady="" boli="" downregulované="" a="" génové="" sady="" metabolizmu="" glukózy="" boli="" upregulované="" v="" skupine="" c="" v="" porovnaní="" so="" skupinou="" b,="" čo="" ukazuje,="" že="" enarodustat="" zvrátil="" zmeny="" metabolizmu="" vyvolané="" cukrovkou="" (obrázok="" 6).="" okrem="" toho="" boli="" génové="" sady="" cyklu="" tca="" downregulované="" v="" skupine="" c="" v="" porovnaní="" so="" skupinou="" b="" (tabuľka="" 2),="" čo="" je="" kompatibilné="" s="" predstavou="" metabolického="" preprogramovania="" indukovaného="" enarodustatom="" v="" proximálnych="" tubuloch="" pozorovanej="" v="" našej="" štúdii="" in="" vitro.="" stručne="" povedané,="" enarodustat="" pôsobil="" proti="" zmenám="" diabetického="" renálneho="" metabolizmu="" z="" transkriptomického="">


Metabolómová analýza renálneho kortikálneho tkaniva
Merali sme absolútne koncentrácie 116 metabolitov súvisiacich s energiou v renálnom kortikálnom tkanive potkanov (n =4, pre každú skupinu) náhodne vybraných z každej skupiny (doplnková tabuľka S1; doplnkový obrázok S3). Bola vykonaná čiastočná diskriminačná analýza najmenších štvorcov (PLS-DA) na posúdenie významnosti triednej diskriminácie (obrázok 7). Vykonali sme analýzu obohatenia súboru metabolitov (MSEA) s použitím metabolitov s premenlivým významom PLS-DA v projekčnom (VIP) skóre $ 1. Rozdiely v metabolizme aminokyselín, ako je glycín, serín, metionín, aspartát, glutamát, arginín, prolín, a b-alanín medzi skupinami A a B boli zaznamenané. Rozdiely v metabolizme aminokyselín boli pozorované aj medzi skupinami B a C. Okrem toho procesy metabolizmu glukózy, ako je glykolýza a glukoneogenéza, vykazovali rozdielne trendy medzi skupinami B a C (obrázok 7).


Vizualizácia údajov o transkriptóme a metabolóme na mape energetickej metabolickej dráhy
Pre komplexné pochopenie zmien energetického metabolizmu sme vizualizovali transkriptómové a metabolómové údaje (obrázok 8). Zistilo sa, že metabolity glykolýzy a cyklu TCA sú akumulované v skupine B v porovnaní so skupinou A, čo môže byť spôsobené nadmerným prítokom glukózy a upreguláciou metabolizmu mastných kyselín v DKD. Koncentrácia aminokyselín bola znížená v skupine B v porovnaní so skupinou A, čo odráža upreguláciu metabolizmu aminokyselín (obrázok 8a). Na rozdiel od toho, akumulácia metabolitov glykolýzy bola zmiernená enarodustatom v dôsledku uľahčeného toku glykolýzy. Enarodustat tiež zvrátil zmeny vyvolané cukrovkou v metabolitoch cyklu TCA a aminokyselinách (obrázok 8b). Okrem toho enarodustat zmiernil akumuláciu glutatióndisulfidu (GSSG) v diabetickom obličkovom tkanive, a tak ukázal vyšší pomer glutatión / GSSG, čo naznačuje, že enarodustat zmiernil oxidačný stres v DKD (obrázok 8a a b). Zníženie oxidačného stresu bolo potvrdené hladinami lipidového peroxidačného markera malondialdehydu v renálnom kortikálnom tkanive: enarodustat zvrátil akumuláciu malondialdehydu v diabetickom renálnom kortikálnom tkanive (doplnkový obrázok S4). Stručne povedané, integrácia údajov o transkriptóme a metabolóme ukázala, že enarodustat pôsobí proti zmenám metabolizmu energie obličiek, ktoré sa vyskytujú v skorých štádiách DKD.


Symetrické zmeny metabolizmu (diabetes vs. enarodustat) sú potvrdené v alternatívnom modeli
Uskutočnili sme transkriptómovú analýzu u diabetických myší vyvolaných alloxánom, čo je ďalší zvierací model diabetu, aby sme potvrdili naše zistenia na modeli potkanov. Protokoly štúdie a základné údaje pre myšací model sú znázornené na obrázku 9. Vylučovanie albumínu močom bolo významne zvýšené v skupine B v porovnaní so skupinou A, čo bolo zvrátené enarodustatom (obrázok 9d). Okrem toho sme použili komplexnú 3-rozmernú analýzu (Clear, Unobstructed Brain/ Body Imaging Cocktails a Computational analysis [CUBIC] – obličky)16 na vizualizáciu glomerulov v obličkách. Glomerulomegália bola viditeľná v skupine B v porovnaní so skupinou A, ktorá bola zvrátená enarodustatom (obrázok 9e). Transkriptómová analýza renálneho tkaniva u diabetických myší indukovaných aloxánom ukázala symetrické zmeny metabolizmu (diabetes vs. enarodustat) rovnakým spôsobom ako v modeli diabetických potkanov indukovaných STZ (obrázok 10): metabolizmus mastných kyselín bol regulovaný cukrovkou, zatiaľ čo glukóza metabolizmus bol upregulovaný enarodustatom. Okrem toho bol metabolizmus aminokyselín upregulovaný cukrovkou a downregulovaný enarodustatom. Enarodustat teda pôsobil proti zmenám metabolizmu energie obličiek, ktoré sa vyskytujú v skorých štádiách DKD v modeli diabetickej myši indukovanej alloxánom, ako aj v modeli diabetických potkanov indukovaných STZ.


DISKUSIA
V tejto štúdii sme preukázali, že enarodustat (JTZ{0}}), perorálny stabilizátor HIF, pôsobí proti zmenám metabolizmu energie obličiek, ku ktorým dochádza v skorých štádiách DKD u potkaních a myších modelov diabetu. Analýzy transkriptómu a metabolómu ukázali symetrické zmeny metabolizmu v obličkovom tkanive (diabetes vs. enarodustat): metabolizmus mastných kyselín a aminokyselín bol upregulovaný v DKD, zatiaľ čo enarodustat downreguloval tieto dráhy a navyše upreguloval metabolizmus glukózy (obrázky 5–10).
Nebolo úplne objasnené, či stabilizácia HIF má ochranné účinky na patofyziológiu DKD alebo nie. Predchádzajúce štúdie ukázali, že diabetické obličkové tkanivo je vystavené hypoxii17 a expresia HIF v diabetickom obličkovom tkanive je nedostatočná v reakcii na ich hypoxické podmienky, čo je čiastočne spôsobené oxidačným stresom.18 Stabilizácia HIF chloridom kobaltnatým zlepšila stav oxidačného stresu a znížila proteinúriu a tubulointersticiálne poškodenie pri DKD vyvolanom STZ.19 Výsledky štúdie na zvieratách tiež ukázali, že stabilizácia HIF chránila pred rozvojom obezity,20 zlepšila citlivosť na inzulín,20 a znížila hladiny cholesterolu v sére.21 Tieto výsledky naznačujú ochranné účinky stabilizácie HIF pri rozvoji DKD. Na rozdiel od toho sa uvádza, že suprafyziologická stabilizácia HIF von Hippel-Lindauovou deléciou indukuje renálnu fibrózu.22 Úloha stabilizácie HIF v progresii DKD môže závisieť od kontextu vzhľadom na pleiotropné účinky HIF a existenciu rôznych fenotypov DKD. Cieľom tejto štúdie bolo objasniť čisté účinky stabilizácie HIF na energetický metabolizmus v diabetickej obličke. Predchádzajúce správy naznačili, že v DKD dochádza k zmenám energetického metabolizmu. Sas et al.10 preukázali zvýšený energetický metabolický tok a akumuláciu metabolitov glukózy v diabetickom renálnom kortikálnom tkanive, čo môže súvisieť s mitochondriálnou dysfunkciou. You et al.23 uviedli, že fumarát, metabolit cyklu TCA, sa akumuloval v diabetickom obličkovom tkanive a priamo prispel k progresii DKD. Už sme predtým ukázali, že metabolity cyklu TCA sa akumulovali v diabetickom obličkovom tkanive, čo bolo zvrátené inhibíciou sodno-glukózového kotransportéra 2 alebo obmedzením kalórií.11 Okrem toho Qi et al.24 ukázali, že enzýmy v glykolytických dráhach vrátane pyruvátkinázy M2 (PKM2), boli upregulované u pacientov s diabetom 1. typu bez DKD v porovnaní s pacientmi s DKD. Aktivácia PKM2 zvrátila akumuláciu metabolitov glykolýzy a obnovila mitochondriálnu funkciu, čiastočne zvýšením toku glykolýzy.24,25 Tieto predchádzajúce správy naznačujú, že akumulácia glykolýzy a metabolitov cyklu TCA môže ovplyvniť progresiu DKD, ktorú možno zmierniť uľahčenou glykolýzou vrátane PKM2 aktivácia. V našej štúdii stabilizácia HIF enarodustatom zvrátila zmeny energetického metabolizmu a zmiernila akumuláciu glykolýzy a metabolitov cyklu TCA v diabetickom renálnom kortikálnom tkanive (obrázok 8). Expresia glykolytických enzýmov vrátane PKM2 bola tiež upregulovaná enarodustatom (doplnkový obrázok S4B). Okrem toho enarodustat zmiernil akumuláciu GSSG a zvýšil pomer glutatión / GSSG, čo naznačuje, že enarodustat zmiernil oxidačný stres v DKD (obrázok 8). Toto zníženie oxidačného stresu vyvolané enarodustatom bolo potvrdené aj zmenami hladín malondialdehydu v renálnom kortikálnom tkanive (doplnkový obrázok S4A). Tieto výsledky naznačujú, že stabilizácia HIF by mala mať ochrannú úlohu v patofyziológii DKD aspoň z metabolického hľadiska. Je isté, že nemôžeme preskúmať, či metabolické preprogramovanie stabilizáciou HIF má priame účinky na progresiu DKD, pretože môže byť nemožné rozlíšiť čisté účinky metabolických zmien na renálny výsledok v dôsledku pleiotropnej úlohy HIF. V našej štúdii však mierna exkrécia albumínu močom a renálne patologické abnormality (glomerulomegália a zhrubnutie glomerulárnej bazálnej membrány) vyvolané diabetom boli zmiernené enarodustatom v spojení s normalizáciou renálneho energetického metabolizmu. Extrahovali sme gény, ktorých zmeny expresie korelovali s hladinami albumínu v moči (257 sond; 232 génov) z údajov microarray v modeli diabetickej myši indukovanej alloxánom a vykonali sme analýzu obohatenia dráhy (doplnkový obrázok S5). V dôsledku toho sú dráhy súvisiace s mitochondriálnou membránou a respiračným transportom elektrónov upregulované v súvislosti s hladinami albumínu v moči, čo naznačuje, že mitochondriálna záťaž úzko súvisí s vylučovaním albumínu močom. Existuje teda možnosť, že metabolická normalizácia diabetického obličkového tkaniva pomocou stabilizátorov HIF môže znížiť mitochondriálnu záťaž a zmierniť progresiu DKD. Naše údaje naznačujú patofyziológiu DKD z metabolického hľadiska nasledovne: Hyperglykémia vytvára potrebu energie na reabsorpciu glukózy v renálnych proximálnych tubuloch; tak je TCA cyklus v mitochondriách násilne aktivovaný, aby uspokojil energetický dopyt v skorých štádiách DKD (upregulácia metabolizmu mastných kyselín a aminokyselín). A stabilizátory HIF môžu zmierniť túto mitochondriálnu záťaž metabolickým preprogramovaním z cyklu TCA na glykolýzu (zníženie regulácie metabolizmu mastných kyselín a aminokyselín a upregulácia glykolýzy), ktorá môže mať ochranné úlohy proti progresii DKD. Na objasnenie toho, ako mitochondriálna záťaž v obličkovom tkanive priamo ovplyvňuje patofyziológiu DKD, sú potrebné ďalšie štúdie vrátane jednobunkových omikov. Ďalšou zaujímavou otázkou je, či stabilizátory HIF priamo ovplyvňujú absorpciu glukózy v proximálnych tubuloch. Naše údaje in vitro ukázali, že produkcia ATP je významne znížená enarodustatom prostredníctvom metabolického preprogramovania z cyklu TCA na glykolýzu (obrázky 1 a 2). Vzhľadom na to, že ATP je potrebný na reabsorpciu glukózy kotransportérom sodíka a glukózy 2, najprv sme predpokladali, že reabsorpcia glukózy môže byť inaktivovaná enarodustatom. Hladiny glukózy v moči sa však významne nelíšili medzi skupinou B a skupinou C v oboch zvieracích modeloch (doplnkový obrázok S6). Pravdepodobne je zníženie produkcie ATP enarodustatom oveľa miernejšie vo fyziologickej situácii v porovnaní s jeho účinkom in vitro; stabilizácia HIF teda neovplyvňuje absorpciu glukózy cez sodno-glukózový kotransportér 2, aspoň v našich experimentoch na zvieratách. Naša štúdia mala 2 obmedzenia. Najprv sme použili diabetické potkany indukované STZ a diabetické myši indukované aloxánom ako modely DKD v počiatočnom štádiu a pozorovali sme krátkodobé účinky diabetických stavov. V klinickom prostredí by sa však stabilizátory HIF podávali pacientom s anémiou v neskorom štádiu DKD. Na pochopenie účinku stabilizácie HIF na zmeny metabolizmu obličiek v neskoršom štádiu DKD je potrebných viac štúdií. Po druhé, v štúdii chýbala dostatočná štatistická sila, pokiaľ ide o disperziu koncentrácií metabolitov v údajoch o metabolómoch, zatiaľ čo údaje o transkriptómoch mali štatistickú silu dostatočne veľkú na to, aby objasnili celkový obraz energetického metabolizmu. Pretože nie veľa metabolitov vykazovalo významný rozdiel medzi skupinami, vykonali sme PLS-DA a vybrali sme metabolity s PLS-DA VIP skóre vyšším alebo rovným 1 pre MSEA. Hoci je ťažké krížovo overiť metabolickú zmenu pomocou samotných metabolomických údajov, výsledky metabolomickej analýzy boli kompatibilné s transkriptomickými údajmi (obrázky 7 a 8), čo poskytuje ďalšiu podporu pre pozorované účinky zmien transkriptómu na metabolizmus energie obličiek. Záverom možno povedať, že enarodustat (JTZ-951), perorálny stabilizátor HIF, pôsobí proti zmenám metabolizmu energie obličiek v skorých štádiách DKD. Naša štúdia naznačuje, že stabilizácia HIF môže slúžiť ako potenciálny zásah, ktorý sa zameriava na dysregulovaný metabolizmus energie obličiek v DKD.

METÓDY
Mito stresový test a test glykolýzy
Bunky HK-2 boli nasadené na 96-jamkovú mikroplatničku s hustotou 1 x 10⁴bunky/jamka. Nasledujúci deň sa metabolický tok meral v reálnom čase pomocou analyzátora Seahorse XFe96 (Agilent) pomocou súpravy Mito Stress Test Kit (103015-100; Agilent) alebo súpravy Glycolytic Rate Assay Kit (103344- 100; Agilent). Koncentrácie glukózy, pyruvátu a glutamínu v kultivačnom médiu boli 10 mmol/l, 1 mmol/l a 2 mmol/l.
transfekcia siRNA
Knockdown HIF{0}} vykonala Stealth RNAi pre ľudský HIF1A (HSS104774 [#1] a HSS104775 [#2]; Thermo Fisher Scientific, Waltham, MA). Stealth RNAi siRNA negatívna kontrola Med GC Duplex #2 (12935112; Thermo Fisher Scientific) sa použila ako negatívna kontrola.
Western blotting
Primárne protilátky použité na farbenie boli anti-ľudská HIF{1}} protilátka (králičia polyklonálna, 1:500; Novus Biologicals, Littleton, CO) a anti-ľudská aktínová protilátka (králičia polyklonálna, 1:1000; Sigma-Aldrich, St Louis, MO). Sekundárna protilátka bola kozia anti-králičia IgG protilátka konjugovaná s chrenovou peroxidázou (170-6515, 1:5000; Bio-Rad Laboratories, Hercules, CA).
Pokusy na zvieratách
Krysy Crl: CD (Sprague Dawley) a myši Crl: CD1 (Institute of Cancer Research) boli získané od Charles River Laboratories Japan Inc. (Yokohama, Japonsko). Všetky experimenty boli schválené Inštitucionálnou revíznou radou Tokijskej univerzity (číslo schválenia P17-110). Všetky postupy na zvieratách sa uskutočňovali podľa pokynov National Institute of Health (Príručka pre starostlivosť a používanie laboratórnych zvierat). Protokoly štúdie sú znázornené na obrázkoch 3 a 9.
Analýza transkriptómu
Celková RNA z renálneho kortikálneho tkaniva sa izolovala pomocou súpravy GenElute Mammalian Total RNA Miniprep Kit (RTN7{{10}}; Sigma-Aldrich). Celková RNA (100 ng) bola označená pomocou súpravy Low Input Quick Amp Labeling Kit (Agilent) a potom hybridizovaná s SurePrint G3 Rat GE v2 8x60K Microarray (pre potkana; Agilent) a SurePrint G3 Mouse GE v{{7 }}x60K Microarray (pre myš). Všetky mikročipové experimenty boli uskutočnené DNA Chip Research Inc. (Tokio, Japonsko). Nespracované údaje boli spracované pomocou R package limma v Bioconductor (http://www.bioconductor.org/), aby sa vykonala korekcia pozadia a normalizácia údajov pomocou metódy kvantilovej normalizácie. Dávkové efekty boli odstránené pomocou ComBat (Bioconductor) v experimente na potkanoch. Rozdielne exprimované gény boli určené pomocou│log2 FC│ väčší alebo rovný 0,5 a hodnota Q < 0,05.="" génová="" ontológia="" a="" analýzy="" kanonickej="" dráhy="" sa="" uskutočňovali="" pomocou="" basespace="" correlation="" engine="" (illumina,="" san="" diego,="" ca).="" údaje="" z="" mikročipov="" boli="" uložené="" v="" národnom="" centre="" pre="" biotechnologické="" informácie="" gene="" expression="" omnibus="" ako="" séria="" gse131221="" (potkan)="" a="" gse139317="">
Analýza obohatenia génovej sady
GSEA je výpočtová metóda, ktorá určuje, či a priori definovaný súbor génov vykazuje štatisticky významné, zhodné rozdiely medzi 2 biologickými stavmi. GSEA bola vykonaná pomocou GSEA v.3.0 (Broad Institute, Cambridge, MA). Dráhy s falošnou mierou objavenia < 0.25="" sa="" považovali="" za="">

Metabolómová analýza
Merania metabolómu boli uskutočnené spoločnosťou Human Metabolome Technologies Inc. (Tsuruoka, Japonsko). Koncentrácie metabolitov sa vypočítali normalizáciou plochy píku každého metabolitu vzhľadom na plochu vnútorného štandardu a použitím štandardných kriviek, ktoré sa získali z 3-bodových kalibrácií. Pozri tiež doplnkové metódy.
Analýza obohatenia metabolitov
Analýza metabolomických údajov bola vykonaná pomocou integrovanej webovej platformy MetaboAnalyst 4.0. Uskutočnil sa PLS-DA a vypočítalo sa súvisiace VIP skóre. Metabolity s PLS-DA VIP skóre vyšším alebo rovným 1 sa použili na MSEA.
Kvantifikácia glomerulárnych oblastí pri obličkových patológiách
Náhodne sme vzali 3 patologické obrázky z každej vzorky sfarbenia kyseliny periodickej – Schiff a zmerali každú glomerulárnu oblasť pomocou Fidži (distribúcia ImageJ; National Institutes of Health, Bethesda, MD).
KUBICKÁ-oblička
Komplexné 3-dimenzionálne zobrazenie glomerulov v tkanive obličiek sa uskutočnilo pomocou CUBIC podľa našich predchádzajúcich prác. Stručne povedané, fixované myšie obličky sa ponorili do CUBIC-L na delipidáciu a potom sa podrobili imunofluorescenčnému farbeniu. Nakoniec sa index lomu zhodoval s umiestnením vzoriek v CUBIC-R plus. Komplexné 3D-rozmerné obrázky z priehľadných obličiek boli získané pomocou na mieru vyrobenej fluorescenčnej mikroskopie so svetelným listom (MVX10-LS; Olympus, Tokio, Japonsko). Primárna protilátka použitá na farbenie bola anti-podocinová protilátka (králičia polyklonálna, 1:100, P0372; Sigma-Aldrich). Sekundárnou protilátkou bol Alexa Flour 555- konjugovaný somársky anti-králičí IgG (1:100, A-31572; Invitrogen, Thermo Fisher Scientific).
Štatistická analýza
Pre viacnásobné porovnania sa použila {{0}}spôsobová analýza rozptylu, po ktorej nasledovali post hoc Tukeyove viacnásobné porovnávacie testy, ak to bolo vhodné. Všetky štatistické analýzy sa uskutočnili pomocou softvéru GraphPad Prism 7 (GraphPad Software, San Diego, CA). P < 0,05="" sa="" považovalo="" za="" štatisticky="" významné.="" údaje="" sú="" prezentované="" ako="" priemer="" ±="">
DISCLOSURE
MN získala honoráre, poplatky za poradenstvo alebo financovanie výskumu od spoločností KyowaHakko-Kirin, Akebia, Astellas, Chugai, GlaxoSmithKline, Japan Tobacco Inc. (JT), Torii, Tanabe-Mitsubishi, Daiichi-Sankyo, Takeda, Ono, Bayer, Boehringer Ingelheim a Alexion. TT získala výskumný grant od JT. Enarodustat (JTZ-951) poskytla spoločnosť JT, Tokio, Japonsko. EAS a HRU sú spoluvynálezcami patentov, ktoré vlastní RIKEN. Časť tejto štúdie bola vykonaná v spolupráci s Olympus Corporation a softvérom podporovaným Bitplane. Druhý autor neuviedol žiadne konkurenčné záujmy.
POĎAKOVANIE
Sme vďační Dr. Shuhei Yao a Dr. Shinji Tanaka za cenné diskusie. Ďakujeme tiež Dr. Tsuyoshi Inoue, Dr. Satoru Fukuda a pani Kahoru Amitani za ich technickú podporu. Táto práca bola čiastočne vykonaná s podporou Isotope Science Center, University of Tokio. Túto prácu podporil grantový pracovník pre Japonskú spoločnosť na podporu vedy (JSPS) Research Fellow (JSPS KAKENHI grant 19J11928 pre SH), Grant-in-Aid for Scientific Research (B) (JSPS KAKENHI grant 18H02824 pre MN ), Grant-in-Aid for Scientific Research (C) (grant JSPS KAKENHI 17K09688 pre TT) a Grant-in-Aid pre vedecký výskum v inovačných oblastiach (grant KAKENHI 26111003 pre MN).


