

Interleukíny, chemokíny a ligandy superrodiny faktora nádorovej nekrózy v patogenéze infekcie vírusom západného Nílu
Sep 08, 2023
Abstraktné: West Nile virus (WNV) je patogén prenášaný komármi, ktorý môže viesť k encefalitíde a smrti u citlivých hostiteľov. Cytokíny hrajú rozhodujúcu úlohu pri zápale a imunite v reakcii na infekciu WNV. Myšie modely poskytujú dôkaz, že niektoré cytokíny ponúkajú ochranu pred akútnou infekciou WNV a pomáhajú pri odstraňovaní vírusov, zatiaľ čo iné hrajú mnohostrannú úlohu v neuropatogenéze WNV a imunitne sprostredkovanom poškodení tkaniva. Cieľom tohto článku je poskytnúť aktuálny prehľad modelov expresie cytokínov v ľudských a experimentálnych zvieracích modeloch infekcií WNV. Tu uvádzame interleukíny, chemokíny a ligandy superrodiny faktora nekrózy nádorov spojené s infekciou a patogenézou WNV a opisujeme komplexné úlohy, ktoré hrajú pri sprostredkovaní ochrany aj patológie centrálneho nervového systému počas alebo po odstránení vírusu. Pochopením úlohy týchto cytokínov počas neuroinvazívnej infekcie WNV môžeme vyvinúť možnosti liečby zamerané na moduláciu týchto imunitných molekúl, aby sme znížili neurozápal a zlepšili výsledky pacientov.
Kľúčové slová: West Nile virus; cytokíny; interleukíny; chemokíny; ligandy superrodiny tumor nekrotizujúcich faktorov; infekčný model

Čínska bylina cistanche rastlina-Protinádorová
1. Úvod
West Nile virus (WNV) je pozitívny jednovláknový RNA vírus patriaci do sérokomplexu japonskej encefalitídy, rodu Flavivirus, čeľade Flaviviridae [1]. Jeho životný cyklus zahŕňa najmä vtáky a komáre, zatiaľ čo ľudia, kone a iné stavovce sa považujú za náhodných hostiteľov [2]. Genóm WNV je preložený do jedného polypeptidu a ko- a posttranslačne spracovaný na desať proteínov: tri štrukturálne (kapsida C, membránový prekurzor prM a obal E), ktoré tvoria virión; sedem neštrukturálnych proteínov (NS1, NS2A, NS2B, NS3, NS4A, 2K, NS4B a NS5) zapojených do vírusového replikačného cyklu, vyhýbania sa vrodenej imunite hostiteľa a patogenézy WNV [3]; a jeden peptid 2K, ktorý hrá úlohu pri preskupovaní cytoplazmatických membrán a Golgiho prenosu proteínu NS4A [4]. Citlivosť na WNV je medzi hostiteľmi veľmi variabilná [5]. Väčšina infekcií WNV u ľudí je buď asymptomatická alebo mierna, prejavuje sa bolesťami hlavy, slabosťou a/alebo horúčkou [6]. U malého percenta pacientov infikovaných WNV (menej ako 1 % [7]) sa však vyvinie neuroinvazívne ochorenie vrátane meningitídy, encefalitídy alebo akútnej ochabnutej paralýzy, u ktorých sa smrť vyskytuje v 10–30 % prípadov [8,9]. . Dlhodobé fyzické a neurokognitívne následky vrátane slabosti, únavy, myalgie, straty pamäti alebo sluchu, depresie a motorickej dysfunkcie sa môžu vyskytnúť aj u 30 až 60 % pacientov, u ktorých sa rozvinie klinické ochorenie [9–11]. Hoci sa v súčasnosti považuje za zoonotické ochorenie s najvyššou prioritou pre populáciu USA [12], neexistujú žiadne štandardné liečebné usmernenia mimo podpornej starostlivosti, ani nie je k dispozícii liek alebo vakcína schválená FDA na liečbu alebo prevenciu neuroinvazívneho ochorenia WNV, respektíve [8]. Patogenéza WNV je charakterizovaná tromi fázami: (1) skorá fáza infekcie kože a rozšírenie do lokálnych drenážnych lymfatických uzlín po uštipnutí infikovaným komárom, (2) šírenie vírusu do periférnych orgánov a (3) invázia do centrálnej nervový systém (CNS) [13]. Na boj proti invázii WNV cicavčí hostiteľ mobilizuje tri obranné línie: kožu a vrodenú imunitu v skorej fáze, po ktorej nasleduje adaptačná (humorálna a bunková) imunita v neskorších štádiách [13,14]. Cytokíny sú signálne proteíny, ktoré sú exprimované mnohými imunitnými a neimunitnými bunkami cicavcov (obrázok 1). Ich indukcia a regulácia sú úzko spojené s replikáciou WNV počas skorej fázy infekcie [15–20]. Aj keď sa podieľajú na všetkých troch líniách obrany proti WNV, prispievajú aj k imunitne sprostredkovanému poškodeniu tkaniva v mozgu. Spomedzi týchto cytokínov sú hlavnými hráčmi v imunite proti WNV interleukíny (IL), chemokíny a superrodina tumor nekrotizujúceho faktora (TNFSF), o čom svedčí profilovanie transkriptómov buniek a tkanív infikovaných WNV pomocou DNA mikročipov alebo sekvenovania RNA [21]. Niekoľko prehľadov objasnilo ich úlohu pri flavivírusových infekciách vo všeobecnosti [22–24] a pri špecifických flavivírusových ochoreniach vrátane vírusov dengue [25,26] a Zika [27]. Blízko príbuzné flavivírusy vyvolávajú u svojich hostiteľov rôzne imunomodulačné profily [28–30] a rozdielne antagonizujú antivírusové dráhy [31]; zdá sa však, že patogenéza WNV má v porovnaní s inými neurotropnými vírusmi jedinečné aspekty [28,32], o ktorých sa bude diskutovať v tomto prehľade. Preto je dôležité zaoberať sa úlohou cytokínov v špecifickom kontexte infekcie WNV.
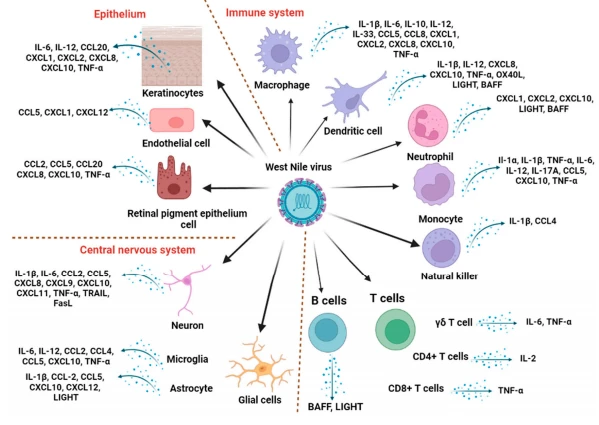
Obrázok 1. Bunkové ciele vírusu West Nile a zodpovedajúca cytokínová odpoveď u cicavcov. Ilustrácia bola vytvorená na Biorender.com. Skratky: BAFF: B-bunkový aktivačný faktor; FasL: Fas ligand; TNF-: faktor nekrózy nádorov -, TRAIL: ligand indukujúci apoptózu súvisiaci s TNF.
Pribúdajú dôkazy, že imunitná odpoveď hostiteľa riadená cytokínmi hrá kľúčovú úlohu v patogenéze WNV a výsledku ochorenia. Po prvé, klinické údaje podporujú, že rôzne profily cytokínov v závislosti od pohlavia [33], zdravotného stavu [34] a ľudských polymorfizmov v týchto génoch kódujúcich imunitu [35–37] korelujú s rôznymi výsledkami infekcie, čo podnecuje použitie súvisiacich biomarkerov na predpovedanie závažnosti ochorenia WNV v klinickom prostredí [33]. Po druhé, použitie cytokínov ako agonistov alebo blokovanie ich účinkov farmaceutickými alebo genetickými prostriedkami na myšacích modeloch preukázalo ich schopnosť úplne zmeniť fenotypy chorôb spojených s WNV [16,38–49]. Preto lepšie pochopenie účasti cytokínov v patogenéze WNV môže nielen pomôcť optimalizovať diagnostiku a prognózu, ale tiež viesť výskum imunomodulačných stratégií na liečbu neurologického ochorenia vyvolaného WNV. V tomto prehľade sumarizujeme zistenia z klinických štúdií, ako aj experimentov uskutočnených za posledné dve desaťročia s použitím modelov infekcie WNV in vitro a in vivo na rekapituláciu IL, chemokínov a ligandov TNFSF, ktoré sa podieľajú na infekcii WNV, čo naznačuje tie, ktoré sú známe Patogenéza WNV a identifikujte kandidátov, ktorí potrebujú ďalší výskum na odhalenie ich vhodnosti ako terapeutických cieľov.

Výhody cistanche tubulosa-Protinádorové
2. Interleukíny (IL) pri infekcii WNV
IL sú proteíny, ktoré modulujú bunkový rast, diferenciáciu a aktiváciu počas antivírusovej odpovede [50]. WNV indukuje uvoľňovanie najmenej 22 IL v cicavčích hostiteľoch (tabuľka S1). K dnešnému dňu IL-1 , IL-6, IL-10, IL-12, IL-17A, IL-22 a IL{{ 9}} boli priamo skúmané (tabuľka 1), zatiaľ čo o zostávajúcich IL zapojených do imunitnej odpovede na infekciu WNV je dostupných len málo informácií. Tabuľka 1. Súhrn interleukínov, chemokínov, chemokínových receptorov a ligandov tumor nekrotizujúcich faktorov spúšťaných po infekcii západonílskym vírusom (WNV), ktorých patogenéza bola študovaná na myšacích modeloch in vivo.


2.1. Rodina Interleukin{2}}
V súčasnosti sa 11 cytokínov považuje za členov rodiny IL-1: IL-1 , IL-1 , antagonista IL-1 receptora [IL-1ra], IL-18, IL-33, IL-36, IL-36, IL-36, IL-36ra, IL-37, a IL-38 [113,114]. Medzi nimi IL-1 [19,76,87,115], IL-1 [10,16,51–53,80,94,116], IL-1ra [16,29,77 ], IL-18 [117] a IL-33 [118] je známe, že sa uvoľňujú ako odpoveď na infekciu WNV.
IL-1 je mimoriadne silný zápalový cytokín, ktorý sa spúšťa ako odpoveď na infekciu WNV in vitro aj in vivo, na periférii a v CNS (tabuľka S1). Úloha IL-1 pri infekcii WNV bola študovaná najmä prostredníctvom myších modelov s deficitom IL-1R1 a neschopných reagovať na IL-1 , IL-1 alebo IL{ {7}}ra [16,54,66,115]. Signalizácia IL-1R1 poskytla myšiam ochranu pred ochorením WNV a mortalitou [16]. Počas skorej WNV encefalitídy IL-1R1 kontroloval replikáciu vírusu a následnú apoptózu v neurónoch [16,115]. Okrem toho IL{19}} kontroloval infiltráciu leukocytov, ako aj reakcie T buniek v CNS [54,66,115] a obmedzoval zápal znížením regulácie prozápalových cytokínov, ako sú TNF- a IL-6 [16] a chemokíny, ako sú CCL2 a CCL5 [16,51,54]. Intrakraniálna injekcia WNV u myší divokého typu C57BL/6 viedla k paradoxným výsledkom týkajúcim sa priameho účinku IL-1 na replikáciu vírusu v mozgu. Zatiaľ čo IL-1 v niektorých štúdiách priamo neovplyvnil replikáciu vírusu v CNS [51,53,115], v inej štúdii sa zistilo, že IL-1 sprostredkúva reštrikciu vírusu CNS [16]. Rozdiely medzi týmito štúdiami napriek použitiu rovnakého modelu infekcie možno čiastočne vysvetliť rozdielmi vo vírusových kmeňoch použitých na infikovanie myší. Vzorce expresie prozápalových IL-1 a protizápalových cytokínov IL{46}}ra a ich úlohy počas infekcie WNV stále nie sú jasné. V ľudských sérach bola expresia IL{47}}ra variabilná u presymptomatických a asymptomatických darcov infikovaných WNV [29], ale počas akútnej infekcie WNV bola zvýšená [16,34]. Zatiaľ čo žiadna štúdia na ľuďoch zatiaľ neuviedla reguláciu IL{52}} počas prirodzenej infekcie WNV, modulácia IL-1 počas infekcie WNV sa v rámci štúdií s použitím experimentálnych modelov líši (tabuľka S1). IL-1 je kľúčovým hráčom vo včasnej, akútnej a závažnej patogenéze WNV. IL-1 je skutočne jedným z prvých cytokínov detegovaných po uštipnutí infikovaným komárom na myšacích modeloch [22,62,119]. Ďalej táto cytokínmi sprostredkovaná migrácia epidermálnych dendritických buniek (DC) a Langerhansových buniek z epidermis do lokálnych drenážnych lymfatických uzlín [22,62,119]. V myšacích mozgoch sa IL-1 vylučoval počas akútnej fázy, hlavne infiltrujúcimi/rezidentnými makrofágmi [54,63] a ešte neskôr počas zotavovania, hlavne astrocytmi [63]. Súčasné dôkazy dokazujú, že IL-1 hrá dvojitú úlohu počas ochorenia vyvolaného WNV, pričom pôsobí protektívne počas akútnej fázy a dlhodobo riadi neurologické následky. Myši majú nedostatok signalizácie IL{70}} aj škvrnitého proteínu spojeného s apoptózou, ktorý obsahuje C-terminálnu doménu náboru kaspázy (ASC), ktorá indukuje aktiváciu v zápale závislú od kaspázy a IL{{76} } sa zistilo, že zvyšujú vírusové titre WNV a závažnosť ochorenia špecificky v CNS [16,51]. Okrem toho u ľudí s anamnézou asymptomatickej alebo závažnej infekcie WNV bola znížená indukcia IL-1 v ich mononukleárnych bunkách periférnej krvi a makrofágoch charakteristickým znakom závažného ochorenia [94]. U darcov krvi, ktorí boli po rutinnom krvnom skríningu pozitívne testovaní na WNV RNA, bol IL-1 upregulovaný v plazme šesť mesiacov po ich počiatočnom darovaní krvi a nepriamo koreloval so záťažou WNV RNA [16]. U myší takáto trvalá nadmerná expresia IL-1, vyvolaná špecificky NOD-podobným receptorom-pyrín obsahujúcim proteíny 3 (NLRP3) zápalovým štiepením v astrocytoch po období zotavenia WNV encefalitídy [16,22,63,119], viedlo k chybnému priestorovému učeniu a synaptickej obnove [53,63]. Nesprávna aktivácia zápalu NLRP3 a sekrécia IL-1 v mozgu sa teda v súčasnosti považuje za pravdepodobný mechanizmus rozvoja dlhodobých neurologických následkov po infekcii WNV [120]. IL-18 je tiež prozápalový cytokín produkovaný po aktivácii zápalu [121,122]. WNV infekcia DC derivovaných z ľudských primárnych monocytov alebo transformovaná ľudská neuroblastómová bunková línia (SK-N-SH, ATCC HTB{106}}™) nezvýšila produkciu IL{107}} [52,117]. Avšak IL{110}} bol upregulovaný v tkanivách sleziny a pľúc myší infikovaných WNV [76]. Predpokladá sa, že IL{113}} na ďalšiu imunopatogenézu DENV [123], ale zatiaľ sa neuskutočnili žiadne výskumy, ktoré by to testovali počas infekcie WNV. Ďalší člen rodiny IL{115}}, IL-33, bol upregulovaný v makrofágoch sleziny myší infikovaných WNV [118]. Signalizácia IL-33 prostredníctvom receptora ST2 môže spustiť prozápalové a protizápalové reakcie [124,125]. Vo všeobecnosti sa pri vírusových infekciách IL{125}} považuje za ochranné činidlo, pretože zvyšuje odpovede CD{126}} T buniek [126] a zmierňuje vírusovú encefalitídu znížením expresie iNOS v CNS [127].
Preto s týmto porozumením by podpora aktivity alebo produkcie tohto cytokínu počas infekcie WNV mohla predstavovať terapeutické výhody. Je potrebná ďalšia práca na skúmanie funkcií tohto cytokínu v kontexte infekcie WNV.

Superman byliny cistanche-Anti-zápalové
2.2. Interleukín 6 rodina
IL-6 je pleiotropný cytokín zapojený do mnohých biologických procesov vrátane imunitných reakcií, hematopoézy, kostného metabolizmu a embryonálneho vývoja [128]. Je to jeden z najdôležitejších cytokínov počas vírusovej infekcie [129] a štúdie využívajúce rôzne experimentálne modely opisujú zmeny IL-6 počas infekcie WNV (tabuľka S1). Štúdie ľudských cytokínov po infekcii WNV vysoko naznačujú dôležitú úlohu IL-6. Akútna infekcia u ľudí by mohla vyvolať vysokú syntézu IL-6 v CSF [130] a sére [130,131] pacientov s horúčkou WNV a neuroinvazívnym ochorením WNV. Okrem toho v inej štúdii boli hladiny IL{10}} v sére nižšie u zdravých viremických jedincov v porovnaní s neinfikovanými jedincami pred a po sérokonverzii IgM [124]. Predĺžená expresia IL-6 bola hlásená v sére jedincov, ktorí po symptomatickej infekcii WNV pociťovali ťažkú dlhodobú únavu [132]; zatiaľ však neboli vykonané žiadne štúdie na podporu kauzálneho vzťahu medzi hladinami IL{16}} a závažnosťou ochorenia súvisiaceho s WNV u ľudí. Jedna in vivo štúdia skúmala účasť IL{18}} na infekcii WNV [67] a opísala, že keď boli infikované WNV, myši s deficitom IL{20}} vykazovali podobnú úmrtnosť ako myši divokého typu [67]. . Je potrebná ďalšia práca na objasnenie, či je to spôsobené menšou úlohou tohto cytokínu pri infekcii WNV alebo špecifickými experimentálnymi podmienkami použitými v tejto štúdii
2.3. Rodina interleukínu 17
V súčasnosti predstavuje 6 zápalových cytokínov IL-17 rodinu, konkrétne IL-17A, IL-17B, IL-17C, IL-17D, IL{ {6}}E a IL-17F [133]. Spomedzi nich je IL-17A, prozápalový cytokín, upregulovaný in vitro [43] a in vivo [43,76,85] po infekcii WNV (tabuľka S1). U ľudí sa pri absencii symptómov zistili zvýšené hladiny IL-17 u jedincov infikovaných WNV v porovnaní s hladinami od neinfikovaných darcov krvi [29]. Naopak, veľmi nízke sérové hladiny IL-17A, ako aj úplná absencia expresie IL{21}}A v CSF [130], boli zistené u pacientov s febrilným aj neuroinvazívnym ochorením. U štyroch sérologicky potvrdených pacientov s WNV s pretrvávajúcimi postinfekčnými symptómami nebolo možné zistiť žiadne zvýšenie IL-17 [125]. Tieto zistenia, ktoré naznačujú súvislosť medzi expresiou IL{26}}A a priaznivým výsledkom infekcie ľudí WNV, sú podporené jednou in vivo štúdiou na myšiach, v ktorej sa zistilo, že IL-17A uľahčuje odstraňovanie WNV indukciou expresia cytotoxických mediátorových génov a podpora cytotoxicity CD8+ T buniek [43].
2.4. Rodina interleukínu 12
Rodina IL-12 zahŕňa štyroch členov: IL-12, IL-23, IL-27 a IL-35 [134], medzi ktorými sú IL{{6 }} a IL-23 sú upregulované in vivo po infekcii WNV (tabuľka S1). IL-12 sa skladá z dvoch kovalentne spojených podjednotiek, p40 a p35, ktoré sa tvoria v kombinácii s bioaktívnym IL-12p70 [134]. IL-23 tiež obsahuje dve podjednotky, p19 a p40, pričom druhá z nich je zdieľaná s IL-12 [134]. V súčasnosti žiadne štúdie na ľuďoch nezdôraznili zmeny IL{20}} po infekcii WNV, ale bolo hlásené, že IL{21}} je vysoko exprimovaný u presymptomatických a asymptomatických darcov krvi infikovaných WNV [29] a nezmenený u symptomatických infikovaných WNV darcov krvi počas skorej fázy infekcie [34]. Cytokínové analýzy u jedincov infikovaných WNV potvrdili, že IL-12p70 mohol byť nadmerne exprimovaný v sére mesiace [132] a dokonca roky [135] po infekcii. Na určenie špecifickej úlohy každého cytokínu sa použili myši s deficitom jednotlivých podjednotiek IL-12 (p35) IL-23 (p19) alebo zdieľanej podjednotky p40. Zvieratá s nedostatkom IL-12p40 alebo IL-23p19, ale nie IL-12p35, mali znížené navádzanie leukocytov do mozgu a zvýšenú úmrtnosť, čo podporuje dôležitosť IL-23 pri protektívnej infiltrácii imunitných buniek a navádzaní počas akútnej fázy infekcie [82].
Na objasnenie účasti týchto cytokínov počas fázy zotavenia z infekcie WNV je potrebný ďalší výskum.
2.5. Rodina interleukínu 10
Rodina cytokínov IL-10 obsahuje IL-10, IL-19, IL-20, IL-22, IL-24, IL{{6 }}, IL-28 a IL-29 [114], medzi ktorými je expresia IL-10 a IL{11}} v modeloch infekcie WNV zvýšená (tabuľka S1). Zvýšené hladiny IL-10 boli detegované v plazme akútnych, viremických [124] asymptomatických darcov krvi s diagnózou WNV [29]. Nezistil sa však žiadny významný rozdiel v IL{16}} vo vzorkách séra [130,131] a CSF [130] od pacientov s horúčkou WNV a neuroinvazívnym ochorením WNV [130]. Genetická alebo farmakologická blokáda signalizácie IL{21}} pomohla zvýšiť prežitie po smrteľnej infekcii WNV u myší [79] a ďalšie štúdie potvrdzujú patogénnu úlohu IL-10 pri akútnej infekcii WNV. Po prvé, predchádzajúca senzibilizácia na slinné proteíny dodávané viacerými uhryznutiami A. aegypti viedla k zvýšenej expresii IL-10 spojenej so zhoršením ochorenia [136]. Po druhé, u myší infikovaných kmeňom WNV odvodeným od škrečka znížená produkcia IL-10 korelovala s nižšou frekvenciou pretrvávania vírusu v slezine v porovnaní s myšou infikovanou WNV NY99- [78]. Jediná štúdia skúmajúca IL-22 opísala minimálny účinok na periférii, ale myši s deficitom IL-22 boli odolnejšie voči smrteľnej infekcii WNV a IL-22 podporoval skorý vstup vírusu - prenos neutrofilov do CNS reguláciou chemotaxie (hlavne prostredníctvom signalizácie Cxcr2) na hematoencefalickej bariére (BBB) [42].
3. Chemokíny pri infekcii WNV
Chemokíny sú chemotaktické cytokíny, ktoré sa viažu na receptory spojené s G proteínom, aby riadili pohyb buniek počas homeostázy a zápalu [114]. Tieto proteíny sú rozdelené do štyroch podrodín: C chemokín, CC chemokín, CXC chemokín a CX3C chemokín, na základe počtu a umiestnenia konzervovaných N-terminálnych cysteínových zvyškov [114]. Zmeny v expresii chemokínov a ich receptorov boli pozorované v reakcii na infekciu WNV na cicavčích modeloch (tabuľka S2). Štúdie zamerané na chemokínové receptory, vrátane Ccr2, Ccr5, Ccr7, Cxcr2, Cxcr3, Cxcr4 a Cx3cr1 v modeloch infikovaných WNV pomohli definovať dôležitosť chemokínov časovo a orgánovo špecifickým spôsobom (tabuľka 1). Každý z týchto receptorov sa však môže viazať na niekoľko chemokínov a doteraz existuje len málo správ o účasti chemokínov na infekcii WNV, vrátane CCL2, CCL7 a CXCL10 (tabuľka 1). Presná dôležitosť jednotlivých chemokínov počas infekcie WNV si teda vyžaduje ďalší výskum.
3.1. CC chemokiny
3.1.1. CCL2, CCL7 a CCL12 (Ccr2 agonisti)
Ccr2 a jeho ligandy hrajú dôležitú úlohu pri mobilizácii monocytov za zápalových podmienok [137] a môžu byť indukované po experimentálnych infekciách WNV (tabuľka S2). Agonista Ccr2 CCL2 je vysoko exprimovaný počas infekcií WNV u ľudí. Expresia génu CCL2 je upregulovaná v mozgových tkanivách pacientov, ktorí podľahli WNV encefalomyelitíde [56]. V súlade s tým bola produkcia CCL2 významne zvýšená v sére pacientov infikovaných WNV [124], pričom mužskí darcovia krvi mali vyššie hladiny CCL2 ako darcovia krvi vo fáze po IgM [33]. Okrem toho zvýšenie CCL2 vo fáze sérokonverzie IgM bolo spojené so zlepšenými výsledkami symptómov po infekcii WNV [33,34]. Počas infekcie WNV aktivácia Ccr2 indukovala monocytózu závislú od CCL2 a CCL7, ale nie CCL12, a chránila myši pred letálnou expozíciou hlavne reguláciou hladín monocytov v krvi [44]. CCL2-sprostredkovala migráciu monocytov do infikovanej dermis a drenážnej lymfatickej uzliny, ako aj ich návrat z krvi do kostnej drene a ich diferenciáciu na DC počas skorej fázy u myší infikovaných WNV [89]. CCL2 tiež sprostredkoval akumuláciu zápalových monocytov v mozgu a ich diferenciácia na mikroglie znížila prežitie, čím zohrávala patogénnu úlohu pri WNV encefalitíde [90]. V inej štúdii s použitím myších modelov sa však CCL2 podieľal len čiastočne na nábore monocytov a nehral kľúčovú úlohu pri prežití po letálnej expozícii [45]. Naopak, nedostatok CCL7 viedol k zvýšenej vírusovej záťaži v mozgu, zvýšenej mortalite a oneskorenej migrácii neutrofilov a CD8+ T buniek do CNS [45]. CCL7 bol signifikantne znížený u ľudí s horším výsledkom v porovnaní s pacientmi s lepším výsledkom v post-IgM fáze [34]. Zatiaľ čo úloha CCL2 v patogenéze WNV zostáva nevyriešená, zdá sa, že CCL7 má priaznivé účinky, ktoré zlepšujú výsledok infekcie WNV.
3.1.2. CCL3, CCL4 a CCL5 (Ccr5 agonisti)
CCR5 a jeho interakcia s chemokínovými ligandami sprostredkúva chemotaktickú aktivitu v leukocytoch a podieľa sa na hematopoéze a imunitnej odpovedi [138]. Chemokíny CCL3, 4 a 5 viažuce sa na chemokínový receptor Ccr5 nebolo možné detegovať v ľudskom sére počas skorej a neskorej fázy infekcie [34,124], ale boli silne indukované v CNS myší po experimentálnej infekcii WNV (tabuľka S2). Deficit Ccr5 u ľudí nepredisponoval k infekcii WNV, ale po infekcii mohli byť pacienti obzvlášť náchylní na skoré a neskoré klinické prejavy, ak ich funkcia Ccr5 chýbala alebo bola blokovaná [35,36,139]. V súlade s týmito zisteniami štúdie na myšiach opisujú, že nedostatok Ccr5 viedol k zvýšenému symptomatickému ochoreniu a úmrtnosti po subkutánnej infekcii WNV, hoci Ccr5 nebol potrebný na imunitu sprostredkovanú bunkami na periférii [32,93]. Myši Ccr5-/- infikované WNV mali výrazne zníženú schopnosť získavať antivírusové mononukleárne bunky špecificky do mozgu infikovaného WNV, zvýšenú permeabilitu BBB a zvýšené hladiny ligandov Ccr5 [32,93]. Jednotlivé úlohy ligandov Ccr5 zostávajú nejasné, pretože na riešenie ich príspevku k patogenéze WNV neboli aplikované žiadne modely in vivo. Jedna in vitro štúdia opísala, že indukcia CCL5 ako odpoveď na infekciu WNV nebola dostatočná na podporu transmigrácie leukocytov cez endoteliálnu vrstvu v modeli BBB obsahujúcom endotelové bunky aj astrocyty [140].
3.1.3. CCL19 a CCL21 (Ccr7 agonisti)
Interakcie medzi Ccr7 a jeho príbuznými ligandami sa podieľajú na indukcii zápalových a T-bunkových reakcií [141]. Infekcia WNV v myších modeloch podporuje, že Ccr7 a ligandy CCL19 a CCL21 by mohli byť upregulované na úrovni génov [64, 76, 110] a prispievať k rezistencii hostiteľa proti WNV. Chemokínový receptor Ccr7 bol nevyhnutný na prežitie po letálnej stimulácii WNV u myší [46]. Ďalej bol Ccr7 potrebný na infiltráciu myeloidných buniek do lymfatických uzlín a obmedzoval ich vstup do mozgu, pomáhal pri odstraňovaní vírusov a znižoval patologické účinky nadmernej produkcie cytokínov [46].
3.2. Chemokíny CXC
3.2.1. CXCL1-3, CXCL6-8 (agonisti Cxcr2)
Cxcr2 hrá neredundantnú úlohu pri sprostredkovaní prenosu neutrofilov, o ktorých sa predpokladá, že sú nosičmi WNV v krvi [49]. Myši s deficitom Cxcr2 mali podobnú úmrtnosť ako myši divokého typu, hoci ich čas do smrti bol oneskorený [49]. Cxcr2 sa viaže na CXCL1, CXCL2, CXCL3, CXCL5, CXCL6, CXCL7 a CXCL8 [114], ktoré sú všetky modulované infekciou WNV (tabuľka S2). CXCL8 je upregulovaný v primárnych ľudských kultúrach infikovaných WNV [88] a bunkových líniách [18,52,57,75,88,98], ako aj vo vzorkách mozgu a miechy z experimentálne infikovaných opíc Rhesus (Macaca mulatta) [77]. Gény spojené s produkciou a upreguláciou CXCL8 boli indukované u novozélandských bielych králikov (Oryctolagus cuniculus) [68]. CXCL8 sa tiež deteguje vo vysokých hladinách u jedincov infikovaných WNV [131,135]. Okrem toho pacienti so závažnejšími symptómami počas skorej fázy infekcie mali signifikantne vyššiu expresiu CXCL8 v sére v porovnaní s WNV-negatívnymi kontrolami [34]. Tieto zistenia naznačujú dôležitú úlohu tohto cytokínu v patogenéze prirodzených infekcií u ľudí. Doteraz však žiadne štúdie in vivo neskúmali toto pozorovanie. To možno vysvetliť nedostatkom skutočných homológov CXCL8 u myší [142], ktoré sú v súčasnosti najpoužívanejšími zvieracími modelmi na štúdium patogenézy WNV.
Na obídenie tohto problému bude potrebné použiť alternatívne WNV modely infekcie, ktoré majú ortologický gén CXCL8, ako sú králiky [70,143–146] a primáty (okrem človeka) [77,147].
Čo robí cistanche — Anti- zápalové
3.2.2. CXCL9 a CXCL10 (ligandy Cxcr3)
Cxcr3 and its ligands are responsible for T-cell trafficking, activation, differentiation, and functions [48]. WNV natural infection in humans can induce high levels of CXCL9 [124] and CXCL10 [34,124,131,135] in the serum. Likewise, these chemokines were elevated following WNV infection in various experimental models (Table S2). Evidence from these models suggests that Cxcr3 signaling can have multifaced roles during WNV infection. In vitro, downregulation of neuronal CXCR3 signaling through TNF receptor 1 (TNFR1) decreased CXCL10 and resulted in apoptosis following WNV infection [99]. In vivo, Cxcr3 had no effect on WNV replication or clearance in peripheral lymphoid tissues [47]. However, CXCL10, but not CXCL9, and its cognate receptor Cxcr3 were required for survival after lethal WNV challenge and regulated the CD8+ T cells migration and clearing of WNV infection in the brain compared to control mice [47,48]. This can explain the evidence of both protective and deleterious effects of CXCL10 in humans. Higher susceptibility to WNV in blood donors was marked by lower levels of CXCL10/IP-10 during the post-IgM phase [33,34]. Importantly, analysis of autopsied neural tissues from humans with WNV encephalomyelitis revealed upregulation of the CXCL10-coding gene [56], and symptom development was positively correlated with CXCL10/IP-10 production during the earliest phase of the disease [34]. In later stages, significantly higher serum levels of CXCL10 were detected in patients with prolonged post-infection fatigue (>6 mesiacov) po symptomatickej infekcii WNV [132]. Prechod CXCL10 od riadenia ochranných imunitných reakcií k škodlivým reakciám si teda vyžaduje ďalší výskum ako možný terapeutický cieľ.
3.2.3. CXCL12 (Cxcr4 Ligand)
Cxcr4 je najviac exprimovaný chemokínový receptor a podieľa sa na migrácii buniek, hematopoéze a navádzaní buniek (148). Zmeny v expresii Cxcr4 a jeho kanonických ligandov CXCL12 môžu byť indukované po experimentálnej infekcii WNV (tabuľka S2), zatiaľ čo vzory ich expresie u pacientov infikovaných WNV sú stále nejasné. Súčasné dôkazy z experimentálnych infekcií naznačujú, že CXCL12 podporuje neurospatogenézu WNV. Expresia CXCL12, ktorá bola sprostredkovaná IL-1 v mikrovaskulatúre CNS [54], obmedzila vstup T buniek do BBB a zabránila vírusovo špecifickým CD{11}} T bunkám vyčistiť WNV v parenchýme CNS, čo má za následok zvýšenú mortalitu na myšom modeli infekcie [100].

Cistanche deserticola – pôsobí protizápalovo
Kliknite sem pre zobrazenie produktov Cistanche
【Požiadajte o viac】E-mail:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
3.3. Chemokíny CX3C
Chemokín CX3CL1 a jeho receptor CX3CR1 môžu vyvolať prozápalové alebo protizápalové reakcie [149]. Ich kódujúce gény boli upregulované in vivo po infekcii WNV u myší B6129PF2 a C57BL6/J [32] a opíc Rhesus [77] (tabuľka S2). Skúmanie na myšom modeli nepodporilo ich úlohu, ktorá pomáha pri prežití proti infekcii WNV [32].
4. Ligandy superrodiny faktora nádorovej nekrózy
Interakcie medzi TNFSF ligandmi a ich príbuznými receptormi riadia prežitie, proliferáciu, diferenciáciu a funkcie imunitných buniek [111]. Z TNFSF ligandov TNF- [72,99,103–105], Fas ligand (FasL) [39,76,110], TNF-súvisiaci ligand indukujúci apoptózu (TRAIL) [69,109,110], CD40L [85,111], faktor aktivujúci B-bunky (BAFF) [112], slabý induktor apoptózy súvisiaci s TNF (TWEAK) [85], OX40L [117] a člen superrodiny 14 faktora nádorovej nekrózy (LIGHT) [76, 150] sa podieľajú na patogenéze WNV (tabuľka S3).
4.1. Faktor nekrózy nádorov
TNF-, cytokín s pro- a protizápalovými vlastnosťami [151], má po infekcii WNV u ľudí nekonzistentné vzory expresie. Analýza ľudského séra počas horúčky WNV a neuroinvazívneho ochorenia WNV neukázala žiadnu zistiteľnú zmenu v expresii TNF [131], ale iní opisujú významnú upreguláciu TNF u pacientov infikovaných WNV počas akútnej fázy [124, 130] a dokonca aj dlho po tom, čo sa vírus pravdepodobne boli odstránené imunitným systémom [125]. TNF- bol významne vyšší u jedincov s anamnézou infekcie WNV a následným rozvojom chronického ochorenia obličiek v porovnaní so zdravými jedincami [135]. Podľa posledných správ o ľuďoch takmer všetky štúdie používajúce experimentálne modely opisujú zvýšený TNF- počas infekcie WNV (tabuľka S3). Štúdie skúmajúce dôležitosť TNF- v patogenéze infekcie WNV naznačujú, že tento cytokín má obmedzenú úlohu pri kontrole infekcie WNV v periférnych orgánoch [38,104], pričom neexistuje konsenzus týkajúci sa signálnej kaskády a príspevku ku kontrole WNV v CNS (tabuľka S3 ). Napríklad signalizácia TNF-receptora 1 (TNF-R1) bola navrhnutá po smere Toll-like receptora (TLR)-3, keďže nedostatok TLR3 viedol k zhoršenej produkcii TNF- počas infekcie WNV v mikrogliách [67], rovnaké pozorovanie sa nevyskytlo u DC derivovaných z kostnej drene [152]. Zatiaľ čo v jednej štúdii mali myši s deficitom TNF-R1 úmrtnosť významne vyššiu ako u myší divokého typu po stimulácii WNV [104], v inej štúdii s použitím rovnakého modelu sa pozoroval opačný jav [67]. Prvá štúdia naznačila, že interakcia TNF s TNF-R1 chránila myši pred infekciou WNV reguláciou migrácie zápalových buniek do mozgu počas akútnej infekcie [104], zatiaľ čo druhá štúdia naznačila, že TNF by mohol byť zodpovedný za skorú neuroinváziu WNV v dôsledku zvýšená permeabilita BBB [67]. Imunizácia myší komponentmi slinných žliaz viedla k skorej produkcii TNF- po infekcii WNV, ktorá bola v súlade s oneskorením infekcie CNS a významne nižšími WNV mozgovými titrami v porovnaní s falošne imunizovanými myšami [153], čo naznačuje ochrannú úlohu počas WNV encefalitídy. Iná štúdia však opísala vyššie hladiny TNF-, ktoré potvrdili zvýšenú patogenitu neuroinvazívnych variantov WNV v porovnaní s neneuroinvazívnymi variantmi u myší [73] a TNF- sa podieľal na neurotoxicite vyvolanej WNV [52]. Je potrebný ďalší výskum
4.2. TRAIL a FasL
TRAIL a FasL aktivujú apoptózu prostredníctvom receptorov bunkovej povrchovej smrti [111]. Tieto cytokíny sú upregulované na génových úrovniach pomocou in vivo modelov, vrátane myší (tabuľka S3). V myšacích modeloch TRAIL prispieva k riešeniu ochorenia [38], zatiaľ čo úloha FasL zostáva nepolapiteľná [28,39]. U myší genetický deficit TRAIL zvýšil náchylnosť na letálnu výzvu WNV a CD8+ T bunky sa stretli s ťažkosťami pri odstraňovaní WNV z neurónov [38]. WNV-indukovaná expresia Fas v neurónoch, funkčný FasL bol potrebný na ochranu myší C57BL/6 s deficitom IFN pred letálnou infekciou WNV a CD8+ T bunky využívali FasL na obmedzenie infekcie WNV v neurónoch [39]. Iná štúdia s použitím tých istých myší s deficitom Fas alebo FasL však nezistila rozdiely v mortalite alebo vírusovej záťaži v mozgu [28]. Nekonzistentné výsledky z týchto štúdií možno pripísať rozdielom vo vírusových kmeňoch (kmeň WNV 3000.0259 [39] oproti kmeňu WNV Sarafend [28]), ako aj spôsobu infekcie zvieraťa (labka [39] oproti intravenóznej ceste [28]) .
4.3. CD40L
CD40L je modulátor širokého spektra humorálnych a bunkových imunitných odpovedí [111] a je regulovaný infekciou WNV v mozgu myší [64]. U myší boli interakcie CD40-CD40L potrebné na ochranu pred letálnou infekciou WNV, účinnú produkciu protilátok B bunkami a migráciu T-buniek cez BBB [40]. Hoci existujú dôkazy, ktoré naznačujú úlohu CD40L pri infekcii WNV, je potrebný ďalší výskum.
4.4. BAFF
BAFF je potrebný na prežitie periférnych B-buniek a homeostázu a je upregulovaný u myších neutrofilov a DC po stimulácii WNV [112]. Signalizácia BAFF bola nevyhnutná pre prežitie proti letálnej infekcii WNV u myší [41]. BAFF z DC, nie neutrofily, pomohol udržať alebo podporiť humorálne reakcie B-buniek na WNV, pretože reakcie protilátok špecifických pre WNV boli znížené u myší bez expresie BAFF na DC [112]. Okrem toho myši s deficitom BAFF receptora boli citlivé na infekciu WNV, ale mohli si vyvinúť trvalú ochrannú imunitu, keď boli liečené imunitným sérom z myši divokého typu s protilátkami proti WNV [41].

cistanche rastlina zvyšujúca imunitný systém
5. Závery
Charakterizácia cytokínov predstavuje hlavný pokrok v našom chápaní celkovej regulácie imunitných reakcií riadených WNV. Cytokínová signalizácia IL-1, IL-23, IL-17A, CCL7, CXCL10, TRAIL, CD40L a BAFF chráni pred akútnou infekciou WNV u myší; IL-10 a IL-22 pomáhajú pri patogenite WNV; IL-6 a IL{10}} nemali počas infekcie žiadny zjavný účinok; a úlohy CCL2, TNF- a FasL zostávajú nepolapiteľné. Určenie presnej funkcie konkrétneho cytokínu môže byť náročné a podčiarkuje najdôležitejšie správy z tohto prehľadu: Po prvé, biologický kontext, ako je bunkový zdroj, cieľ, fáza imunitnej odpovede a prítomnosť alebo neprítomnosť iných cytokíny ovplyvňujú ich expresný vzor a funkciu. Experimentálne podmienky, ktoré sa v rámci štúdií líšia, ako sú vírusové kmene alebo pasáže, laboratórne vyšetrovacie techniky a časové body odberu vzoriek, môžu tiež vysvetliť nekonzistentné, niekedy paradoxné výsledky týkajúce sa úloh cytokínov počas infekcie WNV. Po druhé, výsledky infekcie WNV závisia nielen od vírusového klírensu, ale aj od rozsahu zápalovej reakcie riadenej cytokínmi. Infekcie WNV u ľudí a laboratórnych zvierat poskytujú dôkaz, že prozápalové cytokíny, ako sú IL-1, TNF-, IL-12p70, CXCL10 a IL-6, môžu byť chronicky zvýšené po WNV je vymazaný. To naznačuje, že účinná liečba proti WNV neuroinvazívnemu ochoreniu by mala zahŕňať protizápalové lieky na liečbu exacerbovanej zápalovej odpovede počas akútnej fázy a na prevenciu dlhodobých neurologických následkov, pretože tieto cytokíny sú spojené s poškodením neurónov pri niekoľkých neurodegeneratívnych ochoreniach [154]. . Budúce štúdie sú rozhodujúce pre pochopenie toho, ako môže regulácia týchto cytokínov zlepšiť priebeh ochorenia. To sa dá dosiahnuť štúdiom existujúcich liekov alebo malých molekúl proti vyššie uvedeným cytokínom, ako aj vývojom nových terapeutík, ktoré interferujú s týmito cytokínovými dráhami. Nakoniec tento prehľad zdôrazňuje potrebu ďalšieho výskumu týchto cytokínov, berúc do úvahy biologický význam, ktorý si zachovávajú, čo pomôže identifikovať imunomodulačné terapeutické ciele proti neuroinvazívnemu ochoreniu WNV. Napríklad by sa mali vyvinúť alternatívne infekčné modely na štúdium CXCL8, ktorým doteraz bráni nedostatok skutočných homológov u potkanov a myší. Na pochopenie ich príspevku k imunopatogenéze infekcie WNV je potrebná ďalšia práca zameraná na rozbor úloh dôležitých cytokínov zobrazených v klinických štúdiách na ľuďoch, ako sú IL-15, CCL8, CCL11, CCL13 a CCL20.
Referencie
1. Chambers, TJ; Hahn, CS; Galler, R.; Organizácia, expresia a replikácia genómu Flavivírusu Rice, CM. Annu. Microbiol. 1990, 44, 649-688. [CrossRef]
2. McLean, RG; Ubico, SR; Docherty, DE; Hansen, WR; Sileo, L.; McNamara, TS Prenos vírusu západného Nílu a ekológia u vtákov. Ann. NY Acad. Sci. 2001, 951, 54–57. [CrossRef] [PubMed]
3. Chen, S.; Wu, Z.; Wang, M.; Cheng, A. Innate Immune Evasion sprostredkované neštrukturálnymi proteínmi z čeľade Flaviviridae. Vírusy 2017, 9, 291. [CrossRef] [PubMed]
4. Roosendaal, J.; Westaway, EG; Khromykh, A.; Mackenzie, JM Regulované štiepenia na západonílskom víruse NS4A-2K-NS4B križovatky hrajú hlavnú úlohu pri preusporiadaní cytoplazmatických membrán a Golgiho obchodovaní s proteínom NS4A. J. Virol. 2006, 80, 4623–4632. [CrossRef]
5. Samuel, Genetická variabilita hostiteľa CE a citlivosť vírusu západonílskeho pôvodu. Proc. Natl. Akad. Sci. USA 2002, 99, 11555–11557. [CrossRef] [PubMed]
6. Bai, F.; Ashley Thompson, E.; Vig, PJS; Arturo Leis, A. Súčasné chápanie klinických prejavov západonílskeho vírusu, imunitných odpovedí, neuroinvázie a imunoterapeutických dôsledkov. Patogény 2019, 8, 193. [CrossRef] [PubMed]
7. Petersen, LR; Brault, AC; Nasci, RS; Infekčný, Z.; Služby, H.; Collins, F. West Nile Virus: Review of the Literature. JAMA 2013, 310, 308–315. [CrossRef]
8. Alli, A.; Ortiz, JF; Atoot, A.; Atoot, A.; Millhouse, PW Manažment západonílskej encefalitídy: Neobvyklá komplikácia západonílskeho vírusu. Cureus 2021, 13, e13183. [CrossRef]
9. Ouhoumanne, N.; Lowe, AM; Fortin, A.; Kairy, D.; Vibien, A.; K-Lensch, J.; Tannenbaum, TN; Milord, F. Morbidita, mortalita a dlhodobé následky vírusovej choroby západného Nílu v Québecu. Epidemiol. Infikovať. 2018, 146, 867–874. [CrossRef]
10. Fulton, CDM; Beasley, DWC; Bente, DA; Dineley, KT Dlhodobé neurologické zmeny vyvolané vírusom západného Nílu: Porovnanie modelov pacientov a hlodavcov. Správanie mozgu. Immun. Zdravie 2020, 7, 100105. [CrossRef]
11. Weatherhead, JE; Miller, VE; Garcia, MN; Hasbun, R.; Salazar, L.; Dimachkie, MM; Murray, KO Dlhodobé neurologické výsledky u pacientov infikovaných vírusom západného Nílu: observačná štúdia. Am. J. Trop. Med. Hyg. 2015, 92, 1006–1012. [CrossRef] [PubMed]
12. Tebas, P.; Spitsin, S.; Barrett, JS; Tuluc, F.; Elci, O.; Korelitz, JJ; Wagner, W.; Winters, A.; Kim, D.; Catalano, R.; a kol. Zníženie rozpustného CD163, látky P, programovanej smrti 1 a zápalových markerov: Skúška fázy 1B s aprepitantom u dospelých infikovaných HIV-1-. AIDS 2015, 29, 931–939. [CrossRef] [PubMed]
13. Suthar, MS; Diamond, MS; Gale, M., Jr. Infekcia a imunita vírusom západného Nílu. Nat. Microbiol. 2013, 11, 115–128. [CrossRef]
14. Shrestha, B.; Diamond, MS Úloha CD8 + T buniek pri kontrole infekcie vírusom západného Nílu. J. Virol. 2004, 78, 8312-8321. [CrossRef] [PubMed]
15. Zimmerman, MG; Bowen, JR; McDonald, CE; Pulendran, B.; Suthar, MS infekcia vírusom západného Nílu blokuje zápalovú odpoveď a kostimulačnú kapacitu T-buniek dendritických buniek odvodených od ľudských monocytov. J. Virol. 2019, 93, e00664-19. [CrossRef]
16. Ramos, HJ; Lanteri, MC; Blahník, G.; Negash, A.; Suthar, MS; Brazília, MM; Sodhi, K.; Treuting, PM; Busch, poslanec; Norris, PJ; a kol. Signalizácia IL-1 podporuje prirodzenú imunitnú kontrolu CNS pri infekcii vírusom západného Nílu. PLoS Pathog. 2012, 8, e1003039. [CrossRef]
17. Martina, VČELA; Koraka, P.; van den Doel, P.; Rimmelzwaan, GF; Haagmans, BL; Osterhaus, ADME DC-SIGN zvyšuje infekciu buniek glykozylovaným západonílskym vírusom in vitro a replikácia vírusu v ľudských dendritických bunkách indukuje produkciu IFN- a TNF-. Virus Res. 2008, 135, 64–71. [CrossRef]
18. Kong, K.; Wang, X.; Anderson, J.; Fikrig, E.; Montgomery, RR West Nile Virus zmierňuje aktiváciu primárnych ľudských makrofágov. Viral Immunol. 2008, 21, 78–82. [CrossRef]
19. Kumar, M.; Roe, K.; O'Connell, M.; Nerurkar, VR Indukcia vírusovo-špecifickej efektorovej imunitnej bunkovej odpovede obmedzuje replikáciu vírusu a závažné ochorenie u myší infikovaných kmeňom Eg101 neletálneho západonílskeho vírusu. J. Neuroinflflamm. 2015, 12, 178. [CrossRef]
20. Cheeran, MCJ; Hu, S.; Sheng, WS; Rashid, A.; Peterson, PK; Lokensgard, JR Diferenciálne reakcie ľudských mozgových buniek na infekciu vírusom západného Nílu. J. NeuroVirol. 2005, 11, 512–524. [CrossRef]
21. Kosch, R.; Delarocque, J.; Claus, P.; Becker, SC; Jung, K. Profily génovej expresie v neurologických tkanivách počas infekcie vírusom západného Nílu: Kritická metaanalýza. BMC Genom. 2018, 19, 530. [CrossRef] [PubMed]
22. Hassert, M.; Brien, JD; Pinto, AK Časová úloha cytokínov pri ochrane a patogenéze flavivírusov. Curr. Clin. Microbiol. Rep. 2019, 6, 25–33. [CrossRef]
23. Pan, Y.; Cai, W.; Cheng, A.; Wang, M.; Yin, Z.; Jia, R. Flaviviruses: Innate Imunity, Inflammasom Activation, Inflammatory Cell Death, and Cytokines. Predné. Immunol. 2022, 13, 829433. [CrossRef]
24. Bardina, SV; Lim, JK. Úloha chemokínov v patogenéze neurotropných flavivírusov. Immunol. Res. 2012, 54, 121–132. [CrossRef]
25. Lee, YH; Leong, WY; Wilder-Smith, A. Markers of Dengue Severity: A Systematic Review of Cytokines and Chemokines. J. Gen. Virol. 2016, 97, 3103–3119. [CrossRef]
26. Kuczera, D.; Assolini, JP; Tomiotto-Pellissier, F.; Pavanelli, WR; Silveira, GF Hlavné body pre imunopatogenézu dengue: Posilnenie závislé od protilátok, búrka cytokínov a ďalšie. J. Interferon Cytokine Res. 2018, 38, 69–80. [CrossRef]
27. Maucourant, C.; Queiroz, GAN; Samri, A.; Grassi, MFR; Yssel, H.; Vieillard, V. Vírus Zika v oku cytokínovej búrky. Eur. Cytokine Netw. 2019, 30, 74–81. [CrossRef] [PubMed]
28. Wang, Y.; Lobigs, M.; Lee, EVA; Müllbacher, A. Exocytóza a cytolytické mechanizmy sprostredkované Fas poskytujú ochranu pred encefalitídou vyvolanou vírusom západného Nílu u myší. Immunol. Cell Biol. 2004, 82, 170–173. [CrossRef]
29. Fares-Gusmao, R.; Rocha, BC; Sippert, E.; Lanteri, MC; Áñez, G.; Rios, M. Diferenciálny vzor solubilných imunitných markerov pri asymptomatickej horúčke dengue, západonílskej infekcii a vírusom Zika. Sci. Rep. 2019, 9, 17172. [CrossRef]
30. Clark, DC; Brault, AC; Hunsperger, E. Príspevok modelov hlodavcov k patologickému hodnoteniu flavivírusových infekcií centrálneho nervového systému. Arch. Virol. 2015, 157, 1423–1440. [CrossRef]
31. Zimmerman, MG; Bowen, JR; McDonald, CE; Young, E.; Baric, RS; Pulendran, B.; Suthar, MS STAT5: Cieľ antagonizmu neurotropných flavivírusov. J. Virol. 2019, 93, e00665-19. [CrossRef] [PubMed]
32. Sklo, WG; Lim, JK; Cholera, R.; Pletnev, AG; Gao, JL; Murphy, PM Chemokínový receptor CCR5 podporuje prenos leukocytov do mozgu a prežitie pri infekcii vírusom západného Nílu. J. Exp. Med. 2005, 202, 1087-1098. [CrossRef] [PubMed]
33. Hoffman, KW; Lee, JJ; Foster, GA; Krysztof, D.; Stramer, SL; Lim, JK Pohlavné rozdiely v produkcii cytokínov po infekcii vírusom západného Nílu: Dôsledky pre prejav symptómov. Patog. Dis. 2019, 77, ftz016. [CrossRef] [PubMed]
34. Hoffman, KW; Sachs, D.; Bardina, SV; Michlmayr, D.; Rodriguez, CA; Sum, J.; Foster, GA; Krysztof, D.; Stramer, SL; Lim, JK Rozdiely v skorej produkcii cytokínov sú spojené s vývojom väčšieho počtu symptómov po infekcii vírusom západného Nílu. J. Infect. Dis. 2016, 214, 634–643. [CrossRef]
35. Lim, JK; Louie, CY; Glaser, C.; Jean, C.; Johnson, B.; Johnson, H.; McDermott, DH; Murphy, PM Genetický nedostatok chemokínového receptora CCR5 je silným rizikovým faktorom pre symptomatickú infekciu vírusom západného Nílu: Metaanalýza 4 kohort v americkej epidémii. J. Infect. Dis. 2008, 197, 262–265. [CrossRef]
36. Sklo, WG; Mcdermott, DH; Lim, JK; Lekhong, S.; Yu, SF; Frank, WA; Pape, J.; Cheshier, RC; Murphy, PM Nedostatok CCR5 zvyšuje riziko symptomatickej infekcie vírusom západného Nílu. J. Exp. Med. 2006, 203, 35–40. [CrossRef]
37. Ritupárna, D.; Kerry, G.; Charles, M.; Feng, Q.; Lin, L.; Yan, S.; Ruth, RM; Mark, L.; Richard, B. Asociácia medzi alelami inhibičného faktora migrácie makrofágov (MIF) a encefalitídou západonílskeho vírusu. Cytokín 2016, 78, 51–54. [CrossRef]
38. Shrestha, B.; Pinto, AK; Green, S.; Bosch, I.; Diamond, MS CD8+ T bunky používajú TRAIL na obmedzenie patogenézy vírusu západného Nílu kontrolou infekcie v neurónoch. J. Virol. 2012, 86, 8937–8948. [CrossRef] [PubMed]
39. Shrestha, B.; Interakcie Diamond, MS Fas Ligand prispievajú k CD8 + T-bunkám sprostredkovanej kontrole infekcie vírusom západného Nílu v centrálnom nervovom systéme. J. Virol. 2007, 81, 11749–11757. [CrossRef]
40. Sitati, E.; McCandless, EE; Klein, RS; Diamond, MS CD40-Interakcie ligandu CD40 podporujú prenos CD8 + T buniek do mozgu a ochranu proti encefalitíde vírusu západného Nílu. J. Virol. 2007, 81, 9801-9811. [CrossRef]
41. Giordano, D.; Draves, KE; Young, LB; Roe, K.; Bryan, MA; Dresch, C.; Richner, JM; Diamond, MS; Gale, M.; Clark, EA Ochrana myší s nedostatkom zrelých B buniek pred infekciou vírusom západného Nílu pasívnou a aktívnou imunizáciou. PLoS Pathog. 2017, 13, e1006743. [CrossRef] [PubMed]
42. Wang, P.; Bai, F.; Zenewicz, LA; Dai, J.; Brána, D.; Cheng, G.; Yang, L.; Qian, F.; Yuan, X.; Montgomery, RR; a kol. IL-22 signalizácia prispieva k patogenéze západonílskej encefalitídy. PLoS ONE 2012, 7, e44153. [CrossRef] [PubMed]
43. Acharya, D.; Wang, P.; Paul, A.; Dai, J.; Brána, D.; Lowery, J.; Stokić, D.; Leis, A.; Flavell, R.; Mesto, T.; a kol. Interleukín-17A podporuje cytotoxicitu CD8+ T buniek na uľahčenie odstraňovania západonílskeho vírusu. J. Virol. 2017, 91, e01529-16. [CrossRef] [PubMed]
44. Lim, JK; Obara, CJ; Rivollier, A.; Pletnev, AG; Kelsall, BL; Murphy, PM Chemokínový receptor CCR2 je kritický pre akumuláciu monocytov a ich prežitie pri encefalitíde vírusu západného Nílu. J. Immunol. 2011, 186, 471–478. [CrossRef]
45. Bardina, SV; Michlmay, D.; Hoffman, KW; Obara, CJ; Sum, J.; Charo, IF; Lu, W.; Pletnev, AG; Lim, JK Diferenciálne úlohy chemokínov CCL2 a CCL7 pri monocytóze a migrácii leukocytov počas infekcie vírusom západného Nílu. Physiol. Správaj sa. 2015, 195, 4306–4318. [CrossRef]
46. Bardina, SV; Brown, JA; Michlmayr, D.; Hoffman, KW Chemokínový receptor Ccr7 obmedzuje fatálnu encefalitídu vírusu západného Nílu. J. Virol. 2017, 91, e02409-16. [CrossRef] [PubMed]
47. Klein, RS; Lin, E.; Zhang, B.; Luster, AD; Tollett, J.; Samuel, MA; Engle, M.; Diamond, MS Neuronal CXCL10 riadi nábor CD8 + T-buniek a kontrolu encefalitídy spôsobenej vírusom západného Nílu. J. Virol. 2005, 79, 11457–11466. [CrossRef] [PubMed]
48. Zhang, B.; Chan, YK; Lu, B.; Diamond, MS; Klein, RS CXCR3 sprostredkováva obchodovanie s antivírusovými T bunkami špecifickými pre daný región v centrálnom nervovom systéme počas encefalitídy vírusom západného Nílu. J. Immunol. 2008, 180, 2641–2649. [CrossRef]
49. Bai, F.; Kong, K.; Dai, J.; Qian, F.; Zhang, L.; Brown, ČR; Fikrig, E.; Montgomery, RR Paradoxná úloha neutrofilov v patogenéze západonílskeho vírusu. J. Infect. Dis. 2010, 8031, 1804–1812. [CrossRef]
50. Brocker, C.; Carpenter, C.; Nebert, DW; Vasiliou, V. Evolučná divergencia a funkcie rodiny génu ľudskej Acyl-CoA tioesterázy (ACOT). Hum. Genom. 2010, 4, 411–420. [CrossRef]
51. Kumar, M.; Roe, K.; Orillo, B.; Muruve, DA; Nerurkar, VR; Gale, M.; Verma, S. Inflflammasome Adapter Protein Apoptosis Associated Speck-like Protein Contenting CARD (ASC) je kritická pre imunitnú odpoveď a prežitie pri encefalitíde vírusu západného Nílu. J. Virol. 2013, 87, 3655–3667. [CrossRef] [PubMed]
52. Kumar, M.; Verma, S.; Nerurkar, VR Pro-zápalové cytokíny odvodené z buniek SK-N-SH infikovaných vírusom západného Nílu (WNV) sprostredkúvajú neurozápalové markery a neurónovú smrť. J. Neuroinflflamm. 2010, 7, 73. [CrossRef]
53. Soung, AL; Davé, VA; Garber, C.; Tycksen, ED; Vollmer, LL; Klein, RS IL-1 Preprogramovanie dospelých nervových kmeňových buniek obmedzuje neurokognitívnu obnovu po vírusovej encefalitíde udržiavaním prozápalového stavu. Správanie mozgu. Immun. 2022, 99, 383–396. [CrossRef]
54. Durrant, DM; Daniels, BP; Klein, RS IL-1R1 signalizácia reguluje lokalizáciu a osud T-buniek sprostredkovanú CXCL12- v CNS počas encefalitídy vírusom západného Nílu. J. Immunol. 2014, 193, 4095–4106. [CrossRef] [PubMed]
55. Riccetti, S.; Sinigaglia, A.; Desole, G.; Nowotny, N.; Trevisan, M.; Barzon, L. Modelovanie patogenity západonílskeho vírusu a vírusu Usutu v ľudských nervových kmeňových bunkách. Vírusy 2020, 12, 882. [CrossRef] [PubMed]
56. van Marle, G.; Antony, J.; Ostermann, H.; Dunham, C.; Hunt, T.; Halliday, W.; Maingat, F.; Urbanowski, MD; Hobman, T.; Peeling, J.; a kol. Neurozápal vyvolaný vírusom západného Nílu: gliová infekcia a neurovirulencia sprostredkovaná kapsidovým proteínom. J. Virol. 2007, 81, 10933–10949. [CrossRef]
57. Qian, F.; Chung, L.; Zheng, W.; Bruno, V.; Alexander, RP; Wang, Z.; Wang, X.; Kurscheid, S.; Zhao, H.; Fikrig, E.; a kol. Identifikácia génov kritických pre odolnosť voči infekcii vírusom západného Nílu pomocou analýzy RNA-Seq. Vírusy 2013, 5, 1664–1681. [CrossRef]
58. Yao, Y.; Strauss-Albee, DM; Zhou, JQ; Malawista, A.; Garcia, MN; Murray, KO; Blish, CA; Montgomery, RR Prirodzená odpoveď zabíjačských buniek na vírus West Nile u mladých a starých jedincov s alebo bez predchádzajúcej infekcie. PLoS ONE 2017, 12, e0172625. [CrossRef]
59. Aarreberg, LD; Wilkins, C.; Ramos, HJ; Green, R.; Davis, MA; Chow, K.; Gale, M. Interleukin{1}} Signalizácia v dendritických bunkách indukuje antivírusové reakcie interferónu. mBio 2018, 9, e00342-18. [CrossRef]
60. Uddin, MJ; Suen, WW; Bosco-Lauth, A.; Hartwig, AE; Hall, RA; Bowen, RA; Bielefeldt-Ohmann, H. Kinetics of the West Nile Virus indukované transkripty vybraných cytokínov a Toll-like receptorov v mononukleárnych bunkách periférnej krvi koní. Vet. Res. 2016, 47, 61. [CrossRef]
61. Bielefeldt-Ohmann, H.; Bosco-lauth, A.; Hartwig, A.; Uddin, MJ; Barcelon, J.; Suen, WW; Wang, W.; Hall, RA; Bowen, RA Mikrobiálna patogenéza Charakterizácia neletálnej infekcie vírusom západného Nílu (WNV) u koní: Subklinická patológia a vrodená imunitná odpoveď. Microb. Patog. 2017, 103, 71–79. [CrossRef] [PubMed]
62. Byrne, SN; Halliday, GM; Johnston, LJ; King, NJC Interleukín-1, ale nie faktor nekrózy nádorov, sa podieľa na migrácii Langerhansových buniek vyvolanej vírusom západného Nílu z kože u myší C57BL/6. J. Investig. Dermatol. 2001, 117, 702-709. [CrossRef] [PubMed]
63. Garber, C.; Vašek, MJ; Vollmer, LL; Sun, T.; Jiang, X.; Klein, RS Astrocyty znižujú neurogenézu dospelých počas vírusom vyvolanej dysfunkcie pamäte prostredníctvom interleukínu-1. Nat. Immunol. 2018, 19, 151–161. [CrossRef] [PubMed]
64. Kumar, M.; Nerurkar, VR Integrovaná analýza mikroRNA a ich cieľov súvisiacich s ochorením v mozgu myší infikovaných vírusom západného Nílu. Virológia 2014, 452–453, 143–151. [CrossRef]
65. Lim, SM; van den Ham, HJ; Oduber, M.; Martina, E.; Zaaraoui-Boutahar, F.; Roose, JM; van IJcken, WFJ; Osterhaus, ADME; Andeweg, AC; Koraka, P.; a kol. Transkriptomické analýzy odhaľujú diferenciálnu génovú expresiu imunitných dráh a dráh bunkovej smrti v mozgoch myší infikovaných vírusom západonílskeho pôvodu a vírusom Chikungunya. Predné. Microbiol. 2017, 8, 1556. [CrossRef]
66. Xiea, G.; Weltea, T.; Wanga, J.; Whitemanb, MC; Wickerb, JA; Saxenaa, V.; Conga, Y.; Barretta, ADT; Wang, T. Mutantný kmeň západonílskeho vírusu NS4B-P38G indukuje adaptívnu imunitu prostredníctvom závislých a nezávislých signálnych dráh TLR7-MyD88-. Vaccine 2013, 31, 4143–4151. [CrossRef]
67. Wang, T.; Mesto, T.; Alexopoulou, L.; Anderson, JF; Fikrig, E.; Flavell, RA Toll-like Receptor 3 sprostredkováva vstup západonílskeho vírusu do mozgu a spôsobuje smrteľnú encefalitídu. Nat. Med. 2004, 10, 1366–1373. [CrossRef]
68. Suen, WW; Uddin, MJ; Prow, NA; Bowen, RA; Hall, RA; Bielefeldt-Ohmann, H. Tkanivovo špecifický transkripčný profil cytokínových a chemokínových génov spojených s kontrolou flavivírusu a neletálnou neuropatogenézou u králikov. Virológia 2016, 494, 1–14. [CrossRef] 69. Quick, ED; Leser, JS; Clarke, P.; Tyler, KL Aktivácia vnútorných imunitných odpovedí a mikrogliálna fagocytóza v ex vivo kultivačnom modeli miechových rezov infekcie vírusom západného Nílu. J. Virol. 2014, 88, 13005–13014. [CrossRef]
70. Uddin, MJ; Suen, WW; Prow, NA; Hall, RA; Bielefeldt-Ohmann, H. Výzva vírusom západného Nílu mení profily transkripcie vrodených imunitných génov v mononukleárnych bunkách periférnej krvi králikov. Predné. Vet. Sci. 2015, 2, 76. [CrossRef]
71. Shirato, K.; Miyoshi, H.; Kariwa, H.; Takashima, I. Kinetika prozápalových cytokínov v myších peritoneálnych makrofágoch infikovaných obalovým proteínom glykozylovaným alebo neglykozylovaným vírusom západného Nílu. Virus Res. 2006, 121, 11–16. [CrossRef] [PubMed]
72. Saxenaa, V.; Weltea, T.; Baob, X.; Xiea, G.; Wanga, J.; Higgsc, S.; Teshd, RB; Wang, T. Kmeň západonílskeho vírusu odvodený od škrečka je vysoko oslabený a indukuje diferenciálnu prozápalovú cytokínovú odpoveď v dvoch myšacích bunkových líniách. Virus Res. 2013, 167, 179–187. [CrossRef] [PubMed]
73. Sapkal, GN; Harini, S.; Ayachit, VM; Fulmali, PV; Mahamuni, SA; Bondre, viceprezident; Gore, MM Neutralizačný únikový variant západonílskeho vírusu spojený so zmenenou periférnou patogenitou a profilom diferenciálneho cytokínu. Virus Res. 2011, 158, 130–139. [CrossRef] [PubMed] 74. Fang, H.; Welte, T.; Zheng, X.; Chang, G.-JJ; Holbrook, MR; Soong, L.; Wang, T. δd T bunky podporujú dozrievanie dendritických buniek počas infekcie vírusom západného Nílu. FEMS Immunol. Med. Microbiol. 2010, 59, 71–80. [CrossRef] [PubMed]
75. Garcia, M.; Alout, H.; Diop, F.; Damour, A.; Bengue, M.; Weill, M.; Missé, D.; Lévêque, N.; Bodet, C. Vrodená imunitná odpoveď primárnych ľudských keratinocytov na infekciu vírusom západného Nílu a jej moduláciu slinami komárov. Predné. Bunka. Infikovať. Microbiol. 2018, 8, 387. [CrossRef]
76. Peňa, J.; Plante, JA; Carillo, AC; Roberts, KK; Smith, JK; Juelich, TL; Beasley, DWC; Freiberg, AN; Labute, MX; Naraghi Arani, P. Multiplexné digitálne profilovanie MRNA zápalovej odozvy v modeli myši West Nile Swiss Webster. PLoS Negl. Trop. Dis. 2014, 8, e3216. [CrossRef]
77. Maximová, OA; Sturdevant, DE; Kash, JC; Kanakabandi, K.; Xiao, Y.; Minai, M.; Moore, IN; Taubenberger, J.; Martens, C.; Cohen, JI; a kol. Vírusová infekcia CNS narúša imuno-neurálno-synaptickú os indukciou pleiotropnej génovej regulácie reakcií hostiteľa. Elife 2021, 10, e62273. [CrossRef]
78. Saxena, V.; Xie, G.; Li, B.; Farris, T.; Welte, T.; Gong, B.; Boor, P.; Wu, P.; Tang, SJ; Tesh, R.; a kol. Izolát západonílskeho vírusu odvodený od škrečka indukuje perzistentnú obličkovú infekciu u myší. PLoS Negl. Trop. Dis. 2013, 7, e2275. [CrossRef]
79. Bai, F.; Mesto, T.; Qian, F.; Wang, P.; Kamanaka, M.; Connolly, TM; Brána, D.; Montgomery, RR; Flavell, RA; Fikrig, E. IL-10 Signalizačná blokáda kontroluje infekciu vírusom myšieho západonílskeho vírusu. PLoS Pathog. 2009, 5, e1000610. [CrossRef]
80. Xie, G.; Luo, H.; Tian, B.; Mann, B.; Bao, X.; Mcbride, J.; Tesh, R.; Barrett, AD; Wang, T. Mutantný kmeň západonílskeho vírusu NS4B-P38G indukuje bunkové vnútorné vrodené cytokínové odpovede v ľudských monocytových a makrofágových bunkách. Vaccine 2015, 33, 869–878. [CrossRef]
81. Graham, JB; Swarts, JL; Wilkins, C.; Thomas, S.; Green, R.; Sekine, A.; Voss, KM; Ireton, RC; Mooney, M.; Choonoo, G.; a kol. Myší model chronickej západonílskej vírusovej choroby. PLoS Pathog. 2016, 12, e1005996. [CrossRef] [PubMed]
82. Mesto, T.; Bai, F.; Wang, T.; Kaplan, A.; Qian, F.; Montgomery, R.; Anderson, J.; Flavell, RA; Fikrig, E. Toll-like Receptor 7 zmierňuje smrteľnú encefalitídu západného Nílu prostredníctvom interleukínu 23-závislej infiltrácie a navádzania imunitných buniek. Imunita 2009, 30, 242–253. [CrossRef] [PubMed]
83. Welte, T.; Reagan, K.; Fang, H.; Machain-Williams, C.; Zheng, X.; Mendell, N.; Chang, GJJ; Wu, P.; Blair, CD; Wang, T. Toll-like Receptor 7-indukovaná imunitná odpoveď na kožnú infekciu vírusom západného Nílu. J. Gen. Virol. 2009, 90, 2660–2668. [CrossRef] [PubMed]
84. Luo, H.; Winkelmann, ER; Zhu, S.; Ru, W.; Mays, E.; Silvas, JA; Vollmer, LL; Gao, J.; Peng, BH; Bopp, NE; a kol. Peli1 uľahčuje replikáciu vírusu a podporuje neuroinflamáciu počas infekcie vírusom západného Nílu. J. Clin. Vyšetrovať. 2018, 128, 4980–4991. [CrossRef]
85. Clarke, P.; Leser, JS; Bowen, RA; Tylera, KL vírusom indukované transkripčné zmeny v mozgu zahŕňajú diferenciálnu expresiu génov spojených s interferónom, apoptózou, interleukínovým 17 receptorom A a glutamátovou signalizáciou, ako aj upreguláciou TRNA syntetáz špecifickou pre flavivírus. mBio 2014, 5, e00902-14. [CrossRef]
86. Bourgeois, MA; Denslow, ND; Seino, KS; Holič, DS; Dlhá analýza expresie MT génu v talame a mozočku koní experimentálne infikovaných vírusom západného Nílu. PLoS ONE 2011, 6, e24371. [CrossRef]
87. Garcia-Tapia, D.; Hassett, DE; Mitchell, WJ, Jr.; Johnson, GC; Kleiboeker, SB West Nile Virus Encefalitis: Sekvenčné histopatologické a imunologické udalosti v myšom modeli infekcie. J. NeuroVirol. 2007, 13, 130–138. [CrossRef]
88. Munoz-Erazo, L.; Natoli, R.; Provis, JM; Madigan, MC; Jonathan, N.; King, C. Mikročipová analýza génovej expresie v ľudskom retinálnom pigmentovom epiteli infikovanom vírusom západného Nílu. Mol. Vis. 2012, 18, 730–743.
89. Davison, AM; King, NJC urýchlila diferenciáciu dendritických buniek z migrujúcich monocytov kostnej drene Ly6C Lo pri včasnej dermálnej infekcii vírusom západného Nílu. J. Immunol. 2011, 186, 2382–2396. [CrossRef]
90. Getts, DR; Terry, RL; Getts, MT; Marcus, M.; Rana, S.; Shrestha, B.; Radford, J.; van Rooijen, N.; Campbell, IL; King, NJC Ly6c+ „Zápalové monocyty“ sú mikrogliálne prekurzory získavané patogénnym spôsobom pri encefalitíde vírusu západného Nílu. J. Exp. Med. 2008, 205, 2319–2337. [CrossRef]
91. Michlmayr, D.; McKimmie, CS; Pingen, M.; Haxton, B.; Mansfifield, K.; Johnson, N.; Fooks, AR; Graham, GJ Definovanie chemokínového základu pre získavanie leukocytov počas vírusovej encefalitídy. J. Virol. 2014, 88, 9553–9567. [CrossRef]
92. Vidaňa, B.; Johnson, N.; Fooks, AR; Sánchez-Cordón, PJ; Hicks, DJ; Nuñez, A. Šírenie západonílskeho vírusu a diferenciálna chemokínová odpoveď v centrálnom nervovom systéme myší: Úloha v patogénnych mechanizmoch encefalitídy. Transbound. Emerg. Dis. 2020, 67, 799–810. [CrossRef] [PubMed]
93. Durrant, DM; Daniels, BP; Pasieka, T.; Dorsey, D.; Klein, RS CCR5 obmedzuje kortikálnu vírusovú záťaž počas infekcie centrálneho nervového systému vírusom západného Nílu. J. Neuroinflflamm. 2015, 12, 233. [CrossRef] [PubMed]
94. Qian, F.; Goel, G.; Meng, H.; Wang, X.; Ty, F.; Devine, L.; Raddassi, K.; Garcia, MN; Murray, KO; Bolen, ČR; a kol. Systems Immunology odhaľuje markery citlivosti na infekciu vírusom západného Nílu. Clin. Vaccine Immunol. 2015, 22, 6–16. [CrossRef] [PubMed]
95. Suthar, MS; Brazília, MM; Blahník, G.; McMillan, A.; Ramos, HJ; Proll, SC; Belisle, SE; Katze, MG; Gale, M. A Systems Biology Approach odhaľuje, že tkanivový tropizmus na západonílsky vírus je regulovaný antivírusovými génmi a vrodenými imunitnými bunkovými procesmi. PLoS Pathog. 2013, 9, e1003168. [CrossRef]


